크레는 ZW인데 왜 어떤 게코는 부화 온도로 성별이 정해질까: 도마뱀붙이 세 개체군 이야기
먼저 분명히 밝히고 시작할게요. 오늘 다룰 논문은 크레(크레스티드 게코, Correlophus ciliatus)를 다룬 연구가 아니에요. 중국 동부에 사는 도마뱀붙이(Gekko japonicus)라는 다른 게코를 대상으로 한 연구예요. 크레와 도마뱀붙이는 둘 다 도마뱀붙이하목(Gekkota)에 속하지만 과(family)부터 다른 별개의 종이라서, 이 글에 나오는 온도나 성비를 크레 알에 그대로 적용할 수는 없어요. 크레 알을 몇 도에 두면 원하는 성별이 나온다는 이야기의 근거가 되지도 않고요. 크레는 성염색체로 성별이 정해지는 종이에요. 온도와 성비의 관계를 크레에서 직접 살펴본 자료가 아예 없는 것은 아니지만(Keating의 박사학위논문과 Králová의 학사학위논문으로, 둘 다 동료 심사를 거치지 않았고 후자는 무작위 배정 없는 관찰이에요), 이 두 자료만으로는 크레에서 온도와 성비 사이에 일관된 관계를 확인할 수 없고, 온도가 크레 성 결정의 주된 기작이라거나 온도로 성전환이 일어난다는 것이 입증된 것도 아니에요.
결론부터 말하면 이래요. 성비가 뒤집히는 온도는 종마다 정해진 고정값이 아니었어요. 같은 종 안에서도 개체군마다 온도-성비 반응이 다른 양상을 보였거든요. 위도가 6도쯤 차이 나는 중국 세 도시에서 도마뱀붙이 알을 받아 똑같이 다섯 가지 온도에 넣었더니, 북쪽 두 개체군은 28도나 30도에서 수컷이 유의하게 많았던 반면 남쪽 개체군은 26도부터 30도까지 성비가 1대1에서 유의하게 벗어나지 않았어요. 왜 그렇게 갈리는지까지 밝혀낸 연구는 아니고, 저자들도 가능성 몇 가지를 후보로 남겨 뒀어요.
그런데도 크레 블로그에서 이 논문을 고른 이유가 있어요. 크레를 키우다 보면 “알을 몇 도에 두면 암컷이 나온다더라” 같은 말을 한 번쯤 듣게 되거든요. 그러면 애초에 “온도로 성별이 정해진다”는 게 무슨 뜻일까요? 실제로 그런 게코가 있고 도마뱀붙이가 그중 하나인데, 크레는 크레의 성별은 엄마가 정한다?에서 다룬 대로 성염색체로 성별이 정해지는 쪽이에요. 온도가 성별을 정한다는 게 어떤 일이고, 그게 크레와 왜 다른지를 아래에서 하나씩 볼게요.
논문은 중국 원저우대학교(Wenzhou University)와 추저우대학교(Chuzhou University) 연구팀이 쓴 “Latitudinal Variation in the Pattern of Temperature-Dependent Sex Determination in the Japanese Gecko, Gekko japonicus“로, 학술지 Animals 12권 8호(2022년 4월 7일 게재, 논문 번호 942)에 실렸어요. 오픈 액세스(CC BY 4.0)이고 DOI는 10.3390/ani12080942예요.
크레의 유전적 성별은 알을 낳기 전에 이미 정해져 있어요
먼저 우리 쪽 이야기부터 정리하고 갈게요.
전문적으로 말하면 크레는 유전적 성 결정(GSD, genotypic sex determination) 종이고, 그중에서도 ZZ/ZW 방식이에요. 암컷이 서로 다른 두 성염색체(Z와 W)를 갖고 수컷이 같은 염색체 두 개(Z와 Z)를 가져요. 쉽게 말하면 사람은 아빠의 정자가 X냐 Y냐에 따라 아이의 성별이 갈리는데, 크레는 반대로 엄마의 난자가 Z를 담고 있느냐 W를 담고 있느냐로 새끼의 성별이 갈려요. 그러니까 크레 새끼의 유전적 성별은 알이 산란되기 전에, 어떤 난자가 수정되느냐로 이미 정해지는 셈이에요.
이 사실은 2015년 갬블(Tony Gamble) 연구팀이 게코 12종의 DNA를 RAD-seq이라는 기법으로 훑어서 밝혀냈어요. 크레는 수컷 6마리, 암컷 7마리를 분석했는데 암컷에서만 나타나는 DNA 표지가 57개 나왔고 수컷에서만 나타나는 표지는 하나도 없었어요. 이게 ZW 시스템의 전형적인 신호예요. 자세한 이야기는 크레의 성별은 엄마가 정한다?에 정리해 뒀어요.
그런데 같은 논문에서 훨씬 흥미로운 사실이 하나 더 나왔어요. 게코라는 그룹 전체를 놓고 보면 성 결정 방식이 놀라울 만큼 자주 바뀌어 왔다는 거예요. 갬블 연구팀의 추정으로는 게코 안에서만 성 결정 시스템 전환이 17-25회 일어났어요. 그리고 이 연구의 조상 상태 재구성에서는 도마뱀과 뱀의 공통 조상이 온도로 성별이 정해지는 쪽이었던 것으로 복원됐어요.
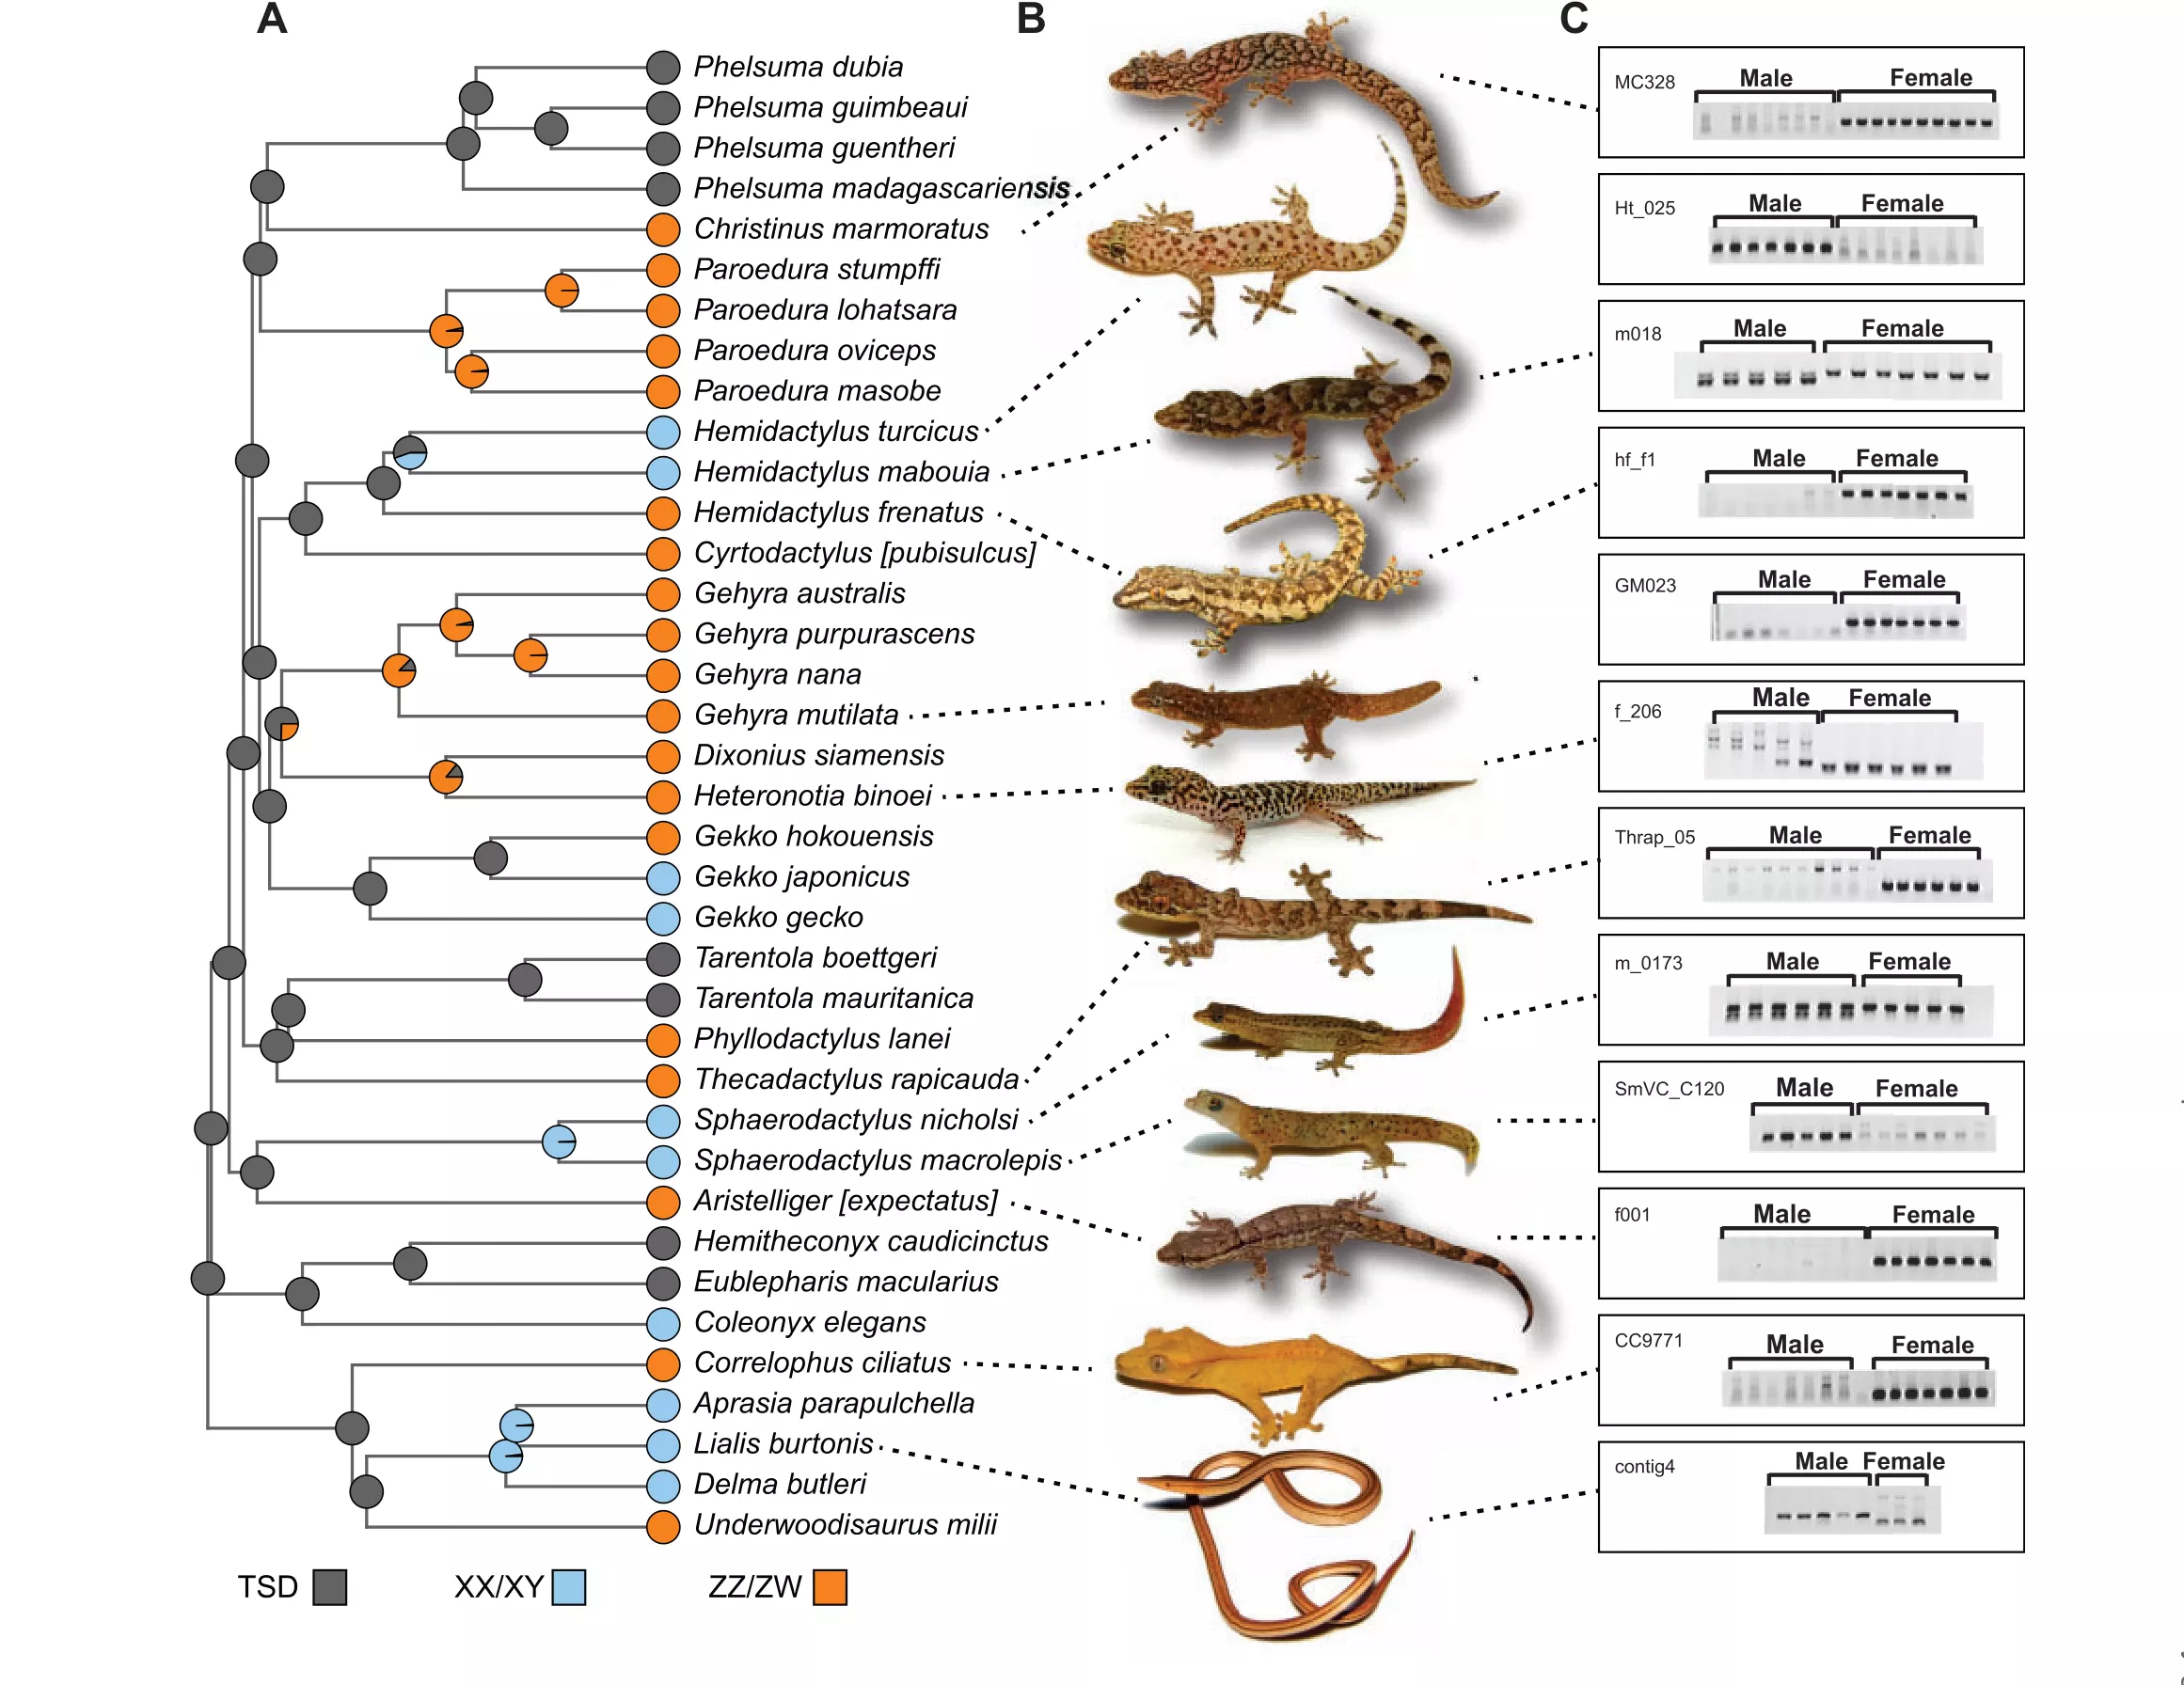
계통수에서 회색으로 칠해진 가지들이 바로 온도로 성별이 정해지는 종들이에요. 크레(주황색, ZW)는 그중에서 성염색체를 새로 만들어 낸 쪽에 속해요. 다시 말해 조상 상태 재구성 결과로 보면 크레의 ZW는 게코 세계에서 “원래부터 그랬던 것”이 아니라 나중에 생겨난 것으로 추정되고, 오늘 다룰 도마뱀붙이는 지금도 온도의존성 성 결정이 보고되는 게코예요.
온도로 성별이 정해진다는 게 정확히 무슨 뜻일까
전문적으로는 온도의존성 성 결정(TSD, temperature-dependent sex determination)이라고 불러요. 배아가 발생하는 동안 알이 겪은 온도에 따라 그 배아가 수컷이 될지 암컷이 될지가 결정되는 방식이에요. 유전자가 아무 역할도 안 한다는 뜻은 아니고, 성별 발달의 방향을 좌우하는 것이 배아가 겪는 온도라는 뜻이에요. 다만 뒤에서 보듯 성염색체와 온도 효과가 함께 작용하는 사례도 있어서, GSD와 TSD가 언제나 완전히 갈라지는 두 진영인 것은 아니에요. 환경이 성별을 정하는 방식을 통틀어 환경적 성 결정(ESD)이라고 하는데, 논문은 TSD를 그중 대표적인 유형으로 소개해요.
TSD는 파충류에서 특히 흔해서, 논문에 따르면 투아타라 전부, 악어류 전부, 거북 대부분, 그리고 일부 도마뱀이 여기에 해당해요.
그런데 “온도가 높으면 수컷” 같은 한 줄로 정리되지 않아요. 온도와 성비의 관계는 종에 따라 방향이 다르고, 크게 세 가지 패턴으로 나눠요.
위 모식도를 표로 정리하면 이래요.
| 패턴 | 다른 이름 | 낮은 온도 | 중간 온도 | 높은 온도 | Tpiv 개수 |
|---|---|---|---|---|---|
| MF형 | TSD Ia | 수컷 많음 | 전환 구간 | 암컷 많음 | 1개 |
| FM형 | TSD Ib | 암컷 많음 | 전환 구간 | 수컷 많음 | 1개 |
| FMF형 | TSD II | 암컷 많음 | 수컷 많음 | 암컷 많음 | 2개 |
여기서 나오는 Tpiv(pivotal temperature, 전환온도 또는 피벗온도)는 데이터에 맞춘 온도-성비 곡선이 수컷 비율 50%로 예측하는 온도를 말해요. 곡선이 50% 선을 지나가는 지점이라고 보면 되는데, 그 온도에 알을 둔다고 실제로 매번 정확히 반반이 나온다는 뜻은 아니에요. MF형이나 FM형은 곡선이 한 방향으로만 움직이니까 Tpiv가 하나지만, FMF형은 곡선이 산 모양이라 올라갈 때 한 번, 내려올 때 한 번, 총 두 개의 Tpiv를 가져요. 논문에서는 앞쪽(암컷에서 수컷으로 넘어가는 지점)을 FM Tpiv, 뒤쪽(수컷에서 암컷으로 넘어가는 지점)을 MF Tpiv라고 불러요.
또 하나 중요한 값이 TRT(transitional range of temperatures, 전환온도범위)예요. 이건 모형이 예측한 성비가 한쪽으로 완전히 쏠리지 않는 온도 구간의 폭인데, 이 논문에서는 예측 성비가 5%에서 95% 사이에 놓이는 온도 범위로 정의했어요. 쉽게 말하면 “이 구간 안에서는 온도가 조금 달라져도 예측 성비가 한쪽 끝으로 급하게 넘어가지 않는다”는 완충 구간의 넓이예요.
TRT가 왜 중요하냐면, TRT가 넓을수록 성비가 한쪽으로 쏠릴 위험이 줄어들 수 있기 때문이에요. 논문이 인용한 훌랭(Hulin) 연구팀의 2009년 연구에 따르면, TRT가 넓은 개체군은 암수가 섞인 둥지가 더 많이 생길 수 있어서 극단적인 성비 편향 위험이 상대적으로 낮다고 봐요. 기후가 변해서 둥지 온도가 몇 도 올라가더라도, TRT가 넓으면 완충 여지가 있는 셈이에요.
오늘의 주인공, 도마뱀붙이는 어떤 게코일까
Gekko japonicus의 우리말 이름은 그냥 도마뱀붙이예요. 영어권에서는 Japanese gecko 또는 Schlegel’s Japanese gecko라고 부르는데, 이름에 “일본”이 들어가긴 해도 일본 고유종은 아니고 중국 동부, 한국 남부, 일본에 걸쳐 널리 살아요.
논문이 적은 이 종의 기본 정보는 이래요.
| 항목 | 내용 |
|---|---|
| 크기 | 성체 주둥이-총배설강 길이(SVL) 80mm 미만인 소형 도마뱀 |
| 활동 시간 | 야행성 |
| 분포 | 중국 동부, 한국 남부, 일본 |
| 번식기 | 5월부터 8월까지 보통 1-2회 산란 |
| 클러치 | 대개 알 2개, 껍질이 단단한 경질란 |
| 지리적 변이 | 남쪽 개체군이 북쪽 두 개체군보다 몸집이 크고 알도 컸음 |
크레 알을 만져 본 분이라면 알겠지만 크레 알은 말랑한 가죽질 껍질이에요. 반면 도마뱀붙이 알은 논문 표현 그대로 “rigid-shelled”, 곧 크레 알과 달리 단단한 껍질을 가져요. 같은 게코라도 알의 성질부터 이렇게 다르다는 점을 염두에 두고 읽으면 좋아요.
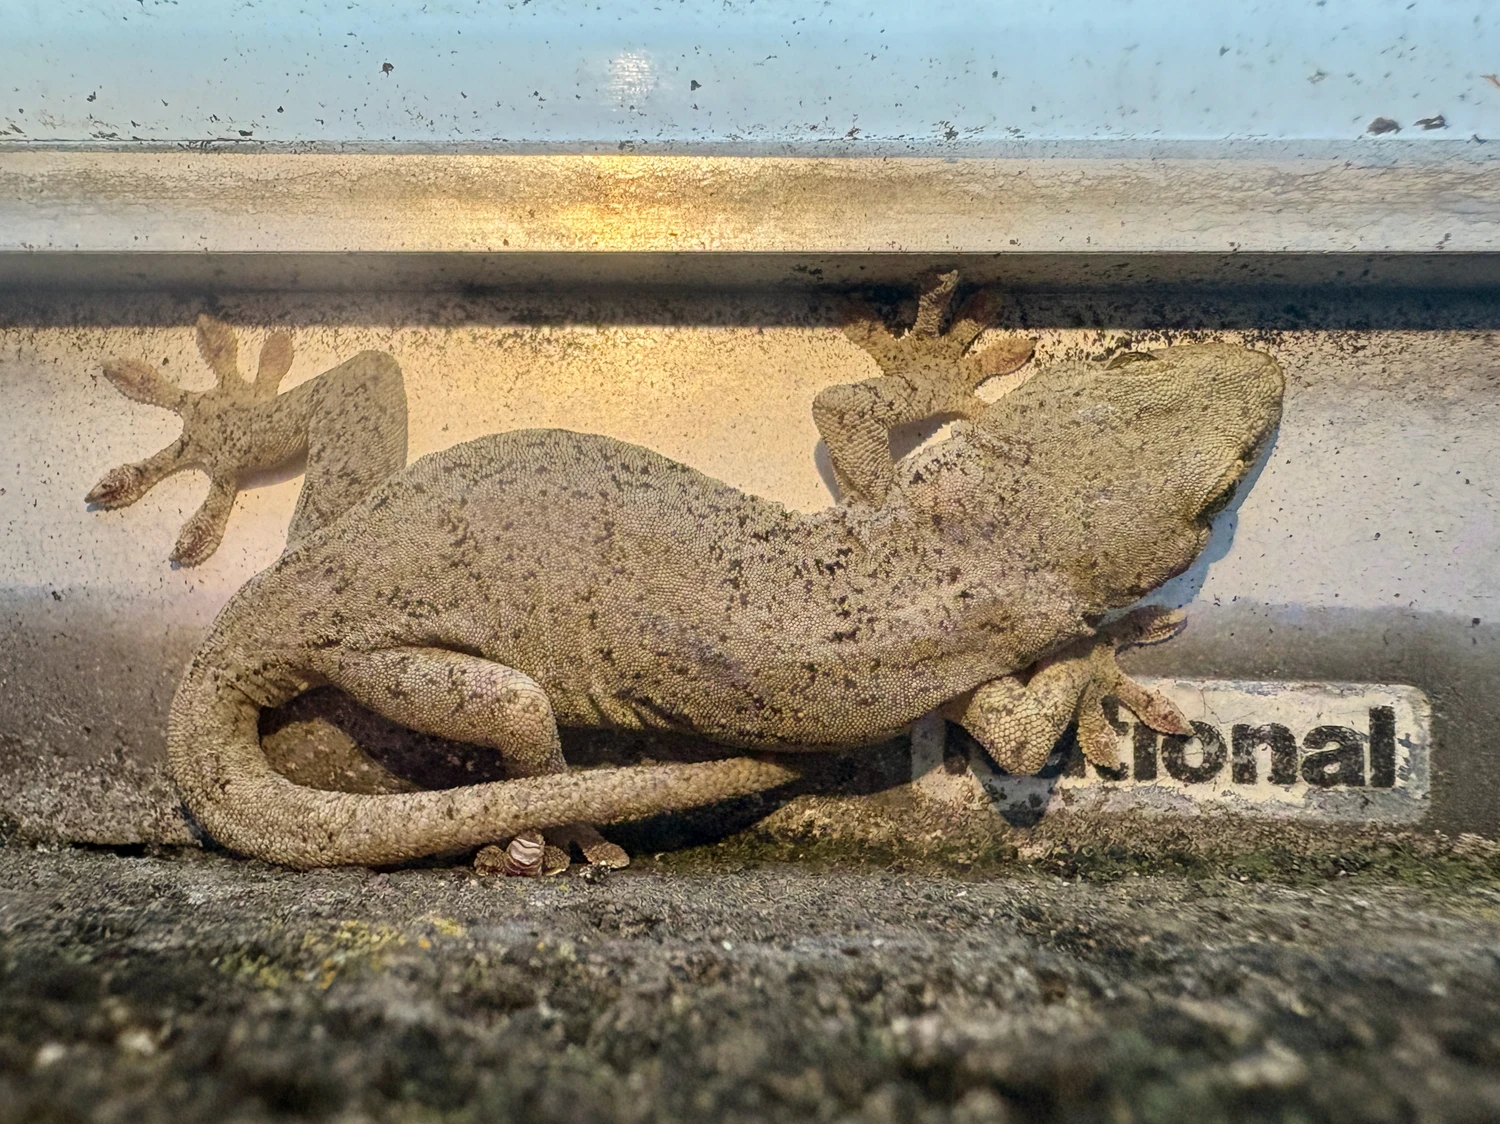
이 종의 서식 방식이 이 연구의 설계와 결과를 이해하는 데 꽤 중요해요. 도마뱀붙이는 도시의 건물 외벽과 틈에서도 흔히 관찰되는 게코거든요. 전남 목포의 오래된 주택가에서 이 종의 미소서식지를 조사한 김대인 연구팀의 논문(Animal Cells and Systems, 2018년 온라인 공개)을 보면, 관찰된 개체 대부분이 흰색 콘크리트 벽과 회벽의 수직면에서 발견됐어요. 계절에 따라 달라진 것은 벽의 종류나 색 같은 범주 항목이 아니라 그 자리의 표면 온도나 조도, 은신처까지의 거리 같은 수치 항목 쪽이었고요. 같은 논문이 인용한 선행 연구에 따르면 이 종은 일몰 후 1-2시간쯤에 가장 활발하고 더 오래 활동하기도 해요. 국내에서는 부산과 경남, 전남 남해안 일대에서 주로 볼 수 있어요.
왜 하필 이 종이었을까: 같은 종인데 결과가 갈렸어요
연구팀이 이 종을 고른 이유가 이 논문의 출발점이에요. 같은 도마뱀붙이인데 조사한 개체군에 따라 결과가 서로 달랐거든요.
먼저 1985년, 일본 규슈대학교의 도쿠나가 쇼지(Shoji Tokunaga)가 이 종의 알을 20, 24, 28, 32도에서 부화시켜 성비를 셌어요. 학술지 Development, Growth & Differentiation에 실린 이 논문이 도마뱀붙이의 TSD를 처음 보고한 연구예요.
| 부화 온도 | 부화한 개체 수 | 수컷 비율 |
|---|---|---|
| 20도 | 0마리(부화 실패) | 측정 불가 |
| 24도 | 14마리 | 0.07 |
| 28도 | 20마리 | 0.75 |
| 32도 | 21마리 | 0.24 |
(도쿠나가 1985년 논문 초록의 수치예요. 수컷 판별은 뮐러관(Müllerian duct)의 유무로 했어요.)
낮은 온도(24도)와 높은 온도(32도)에서는 암컷이 압도적으로 많고, 중간 온도(28도)에서 수컷이 많이 나왔죠. 앞에서 본 FMF형(TSD II)의 전형이에요.
그런데 여기서 이야기가 복잡해져요. Li 연구팀이 정리한 바에 따르면,
- 일본 개체군에서는 핵형 검사에서 구분되는 이형(heteromorphic) 성염색체와 TSD가 함께 나타난다고 보고됐어요.
- 반면 중국 난징 개체군을 조사한 1986년 핵형(karyotype) 연구에서는 이형 성염색체가 발견되지 않았어요.
- 게다가 난징 개체군을 다룬 딩(Ding) 연구팀의 2012년 논문에서는 중간 온도(28도)에서 성비가 거의 반반으로 나왔어요. 일본 개체군에서 수컷이 몰렸던 그 온도인데도요.
정리하면 이래요. 같은 종인데 어떤 개체군에서는 핵형으로 구분되는 이형 성염색체가 보고됐고 어떤 개체군에서는 그게 검출되지 않았으며, 같은 28도인데 어떤 개체군은 수컷이 몰리고 어떤 개체군은 거의 반반이 나와요. 그러니 “도마뱀붙이의 Tpiv는 몇 도다”라고 한 줄로 말하는 게 애초에 불가능한 상황이었던 거예요.
여기서 짚고 갈 게 하나 있어요. 핵형으로 구분되는 이형 성염색체가 보이지 않는다고 해서 성염색체가 아예 없다는 뜻은 아니에요. 크레처럼 Z와 W의 생김새가 거의 같은 동형 성염색체는 핵형 검사로 잡히지 않으니까요. 반대로 성염색체를 갖고 있으면 온도는 아무 상관 없을 것 같지만, 실제로는 성염색체와 온도 효과가 한 종 안에서 공존하는 사례가 최근 여러 도마뱀에서 보고되고 있어요. 논문의 Simple Summary가 이 점을 직접 언급해요. 이건 뒤에서 크레 이야기를 할 때 다시 나오니 기억해 두면 좋아요.
실험: 위도 6도 차이의 세 도시
연구팀은 중국 동부에서 위도가 다른 세 도시를 골라 그곳에서 산란을 앞둔 암컷을 잡아 왔어요. 2016년 5월 초의 일이에요.
| 개체군 | 위치 | 위도 | 잡은 임신 암컷 | 회수한 온도 기록계 |
|---|---|---|---|---|
| 옌청(Yancheng) | 북부 | 33°43′N, 120°23′E | 181마리 | 10개 중 5개 |
| 추저우(Chuzhou) | 중부 | 32°17′N, 118°17′E | 80마리 | 10개 중 0개 |
| 원저우(Wenzhou) | 남부 | 27°45′N, 120°36′E | 210마리 | 10개 중 7개 |
가장 북쪽 옌청과 가장 남쪽 원저우 사이의 위도 차이는 약 6도예요.
각 지역에는 단추만 한 온도 기록계(iButton) 10개를 설치해 5월 초부터 7월 말까지 3시간마다 자동으로 서식지 온도를 기록했어요. 그런데 이 대목에서 현장 연구의 고달픔이 드러나요. 이 종의 둥지는 개인 건물 틈새에 있어서 연구팀이 실제 둥지를 찾는 게 불가능했어요. 그래서 임신 암컷이 발견된 건물의 틈에 기록계를 무작위로 넣어 두는 방식으로 “둥지가 될 만한 곳”의 온도를 대신 쟀어요. 그마저도 건물이 리모델링되거나 아예 철거되는 바람에 옌청에서 5개, 원저우에서 7개만 회수했고 추저우에서는 한 개도 회수하지 못했어요.
알을 받아 다섯 가지 온도에 나눠 넣기
잡아 온 암컷은 원저우대학교 실험실에서 한 마리씩 플라스틱 상자에 넣어 길렀어요. 상자 안쪽에는 랩을 깔아 알을 쉽게 떼어낼 수 있게 했고, 은신처로 쓸 판지를 넣어 줬어요. 방 온도는 25도 정도로 유지하고 조명은 6시 30분에 켜고 18시 30분에 껐으며, 16시부터 24시까지는 상자 아래에 열원을 둬서 체온 조절을 할 수 있게 했어요. 먹이는 밀웜(Tenebrio molitor) 유충과 귀뚜라미(Acheta domesticus)에 비타민과 미네랄을 묻혀 물과 함께 무제한 급여했고요. 크레 사육과 통하는 구석이 꽤 많죠.
상자는 하루 네 번씩 확인해 갓 낳은 알을 찾았어요. 한 클러치의 알 두 개는 보통 서로 붙어 있어서 같이 무게를 잰 다음, 각 알의 부피 비율로 나눠 개별 무게를 계산했어요. 알의 부피는 타원체 부피 공식으로 구했고요.
\[ V = \frac{4}{3}\pi \times \frac{L}{2} \times \left(\frac{W}{2}\right)^{2} \]
여기서 \(L\)은 알의 길이, \(W\)는 알의 너비예요. 디지털 캘리퍼로 0.01mm 단위까지 쟀어요. 알을 다 받은 암컷은 8월에 모두 잡았던 자리에 놓아 줬어요.
한 클러치의 알 두 개는 함께 작은 플라스틱 상자에 넣고 축축한 버미큘라이트(수분 퍼텐셜 -220kPa)에 절반쯤 묻었어요. 뚜껑에는 지름 2mm 구멍 네 개를 뚫었고, 매주 증발한 물을 보충했어요. 그리고 이 상자들을 24, 26, 28, 30, 32도로 설정한 다섯 대의 인큐베이터 중 하나에 배정했어요. 각 온도에서 예상 부화 기간의 약 90%가 지난 시점부터는 하루 네 번씩 들여다보며 새끼가 나왔는지 확인했고요.
성별을 어떻게 확인했을까
이 부분이 크레 사육자에게 특히 와닿는 대목이에요. 게코 새끼의 성별을 알아내는 건 연구실에서도 쉽지 않거든요. 연구팀은 개체가 언제까지 살았느냐에 따라 네 가지 방법을 썼어요.
| 개체의 생존 기간 | 성별 판별 방법 |
|---|---|
| 1개월 이내 사망 | 생식소를 떼어 5μm 두께로 절편을 만들고 헤마톡실린-에오신으로 염색해 현미경으로 관찰 |
| 1-2개월 사망 | 생식소를 헤마톡실린-에오신으로 염색한 뒤 실체현미경으로 형태 관찰 |
| 2-4개월 사망 | 위와 같되 염색 없이 형태만 관찰 |
| 4개월 이상 생존 | 반음경(hemipenis)을 외번시켜(밖으로 나오게 해) 수컷 여부 확인 |
죽은 개체는 발견 즉시 영하 80도 냉동고에 넣어 보관했어요. 결국 살아 있는 개체는 4개월이 지나야 성별을 알 수 있었다는 뜻인데, 어린 개체의 성별을 바로 판별하기 어렵다는 점은 크레 사육에서도 비슷해요. 크레 새끼의 성별을 미리 알 방법이 아직 없다는 이야기는 크레의 성별은 엄마가 정한다?에서 다뤘어요.
한 가지 덧붙이면, 논문은 절편 관찰과 생식소 형태 관찰의 장비를 모두 실체현미경(Nikon SMZ800N) 하나로 적었어요. 5μm 절편은 보통 광학현미경으로 보는 것이라 표기가 다소 뭉뚱그려진 것으로 보이는데, 어느 쪽이든 성별 판정 결과 자체가 달라지는 대목은 아니에요.
통계는 R의 embryogrowth 패키지(v8.2)에 있는 tsd 함수로 온도-성비 반응 곡선을 추정했고, 로지스틱 모형과 flexit 모형 중 AICc 기준으로 더 잘 맞는 쪽을 골랐어요. 세 개체군 모두 로지스틱 모형이 선택됐고, Tpiv와 TRT는 베이지안 MCMC로 추정했어요.
결과 1: 남쪽이 더 덥고, 북쪽이 더 많이 흔들렸어요
기록계를 회수한 두 지역의 서식지 온도예요(원문 Table 1).
| 온도 항목(도) | 옌청(북부) | 원저우(남부) | 통계 |
|---|---|---|---|
| 최고 | 29.4 ± 0.6 | 30.8 ± 0.3 | F(1, 10) = 4.462, p = 0.061 |
| 평균 | 25.0 ± 0.3 | 27.8 ± 0.2 | F(1, 10) = 52.504, p < 0.001 |
| 최저 | 22.0 ± 0.1 | 25.5 ± 0.3 | F(1, 10) = 71.414, p < 0.001 |
| 일교차 | 7.4 ± 0.5 | 5.3 ± 0.5 | F(1, 10) = 8.440, p = 0.016 |
값은 평균 ± 표준오차예요. 두 가지가 눈에 띄어요.
첫째, 남쪽 원저우가 평균 2.8도 더 따뜻해요. 당연한 결과 같지만 뒤에 나올 해석의 전제가 되니 기억해 두세요.
둘째, 북쪽 옌청은 하루 안에서 온도가 더 크게 흔들려요(일교차 7.4도 대 5.3도). 측정 기간에는 남쪽 원저우가 더 따뜻했고, 하루 동안의 온도 변동 폭은 더 작았다는 뜻이에요.
결과 2: 부화율에서는 온도 효과가 검출되지 않았어요
부화 성공률은 모든 처리에서 86.7%에서 98.4% 사이로 높았고, 부화 온도(F(4,830) = 0.06, p = 0.993)도 개체군(F(2,830) = 0.21, p = 0.814)도 둘의 상호작용(F(8,830) = 1.24, p = 0.271)도 부화율에 유의미한 영향을 주지 않았어요.
이 결과가 왜 중요할까요? 처리 온도와 부화율 사이에 뚜렷한 관계가 검출되지 않았다는 점은, 관찰된 성비 차이가 단순히 특정 온도에서 배아가 많이 죽어서 생긴 현상일 가능성을 낮춰 주기 때문이에요. 만약 어떤 온도에서 알이 30%씩 죽었다면, 관찰된 성비 편향이 실제 성 결정 때문인지 차별적 사망 때문인지 구분하기가 훨씬 어려웠을 거예요.
다만 여기에는 한계가 있어요. 부화하지 못한 배아의 성별까지 확인한 것은 아니라서, 성별에 따라 죽는 비율이 달랐을 가능성을 이 결과만으로 완전히 배제할 수는 없어요. 성별별 사망률을 직접 비교하려면 죽은 배아의 성별을 알아야 하니까요. 도쿠나가의 1985년 논문도 초록에서 관찰된 성비가 성별에 따른 차별적 사망 때문일 가능성은 낮다고 봤는데, 그렇게 판단한 근거까지는 초록에 적혀 있지 않아요.
알 무게와 새끼의 성별도 관계가 없었어요(Wald 검정, χ² = 0.472, p = 0.492). 큰 알에서 수컷이 더 나오거나 하는 일은 없었다는 뜻이에요.
결과 3: 세 개체군의 성비가 이렇게 달랐어요
이제 핵심이에요. 아래는 원문 Table 2의 수치를 옮겨 재구성한 표이고, 맨 오른쪽 “수컷 비율” 열은 제가 암수 개체 수로 직접 계산해 덧붙인 값이에요(성별 미확인 개체는 제외하고 계산했어요).
| 개체군 | 부화 온도(도) | 암컷:수컷 (미확인) | 1대1에서 벗어났는지 검정 | 수컷 비율(계산값) |
|---|---|---|---|---|
| 옌청 | 24 | 47:12 (0) | χ² = 20.763, df = 1, p < 0.001 | 0.20 |
| 옌청 | 26 | 44:25 (2) | χ² = 5.232, df = 1, p = 0.022 | 0.36 |
| 옌청 | 28 | 16:44 (1) | χ² = 13.067, df = 1, p < 0.001 | 0.73 |
| 옌청 | 30 | 29:42 (2) | χ² = 2.380, df = 1, p = 0.123 | 0.59 |
| 옌청 | 32 | 39:10 (0) | χ² = 17.163, df = 1, p < 0.001 | 0.20 |
| 추저우 | 24 | 22:3 (0) | χ² = 14.440, df = 1, p < 0.001 | 0.12 |
| 추저우 | 26 | 25:12 (3) | χ² = 4.568, df = 1, p = 0.033 | 0.32 |
| 추저우 | 28 | 8:13 (0) | χ² = 1.190, df = 1, p = 0.275 | 0.62 |
| 추저우 | 30 | 7:20 (2) | χ² = 6.259, df = 1, p = 0.012 | 0.74 |
| 추저우 | 32 | 17:1 (0) | χ² = 14.222, df = 1, p < 0.001 | 0.06 |
| 원저우 | 24 | 41:8 (3) | χ² = 22.224, df = 1, p < 0.001 | 0.16 |
| 원저우 | 26 | 34:44 (6) | χ² = 1.282, df = 1, p = 0.258 | 0.56 |
| 원저우 | 28 | 24:24 (1) | χ² = 0.000, df = 1, p = 1.000 | 0.50 |
| 원저우 | 30 | 43:46 (0) | χ² = 0.101, df = 1, p = 0.750 | 0.52 |
| 원저우 | 32 | 51:18 (1) | χ² = 15.783, df = 1, p < 0.001 | 0.26 |
세 개체군을 합치면 부화한 새끼가 모두 790마리이고, 그중 769마리의 성별을 확인했어요. 굵게 표시한 p값이 통계적으로 유의미한 경우예요. 세 개체군을 하나씩 볼게요.
옌청(북부): 28도에서 수컷이 몰렸어요
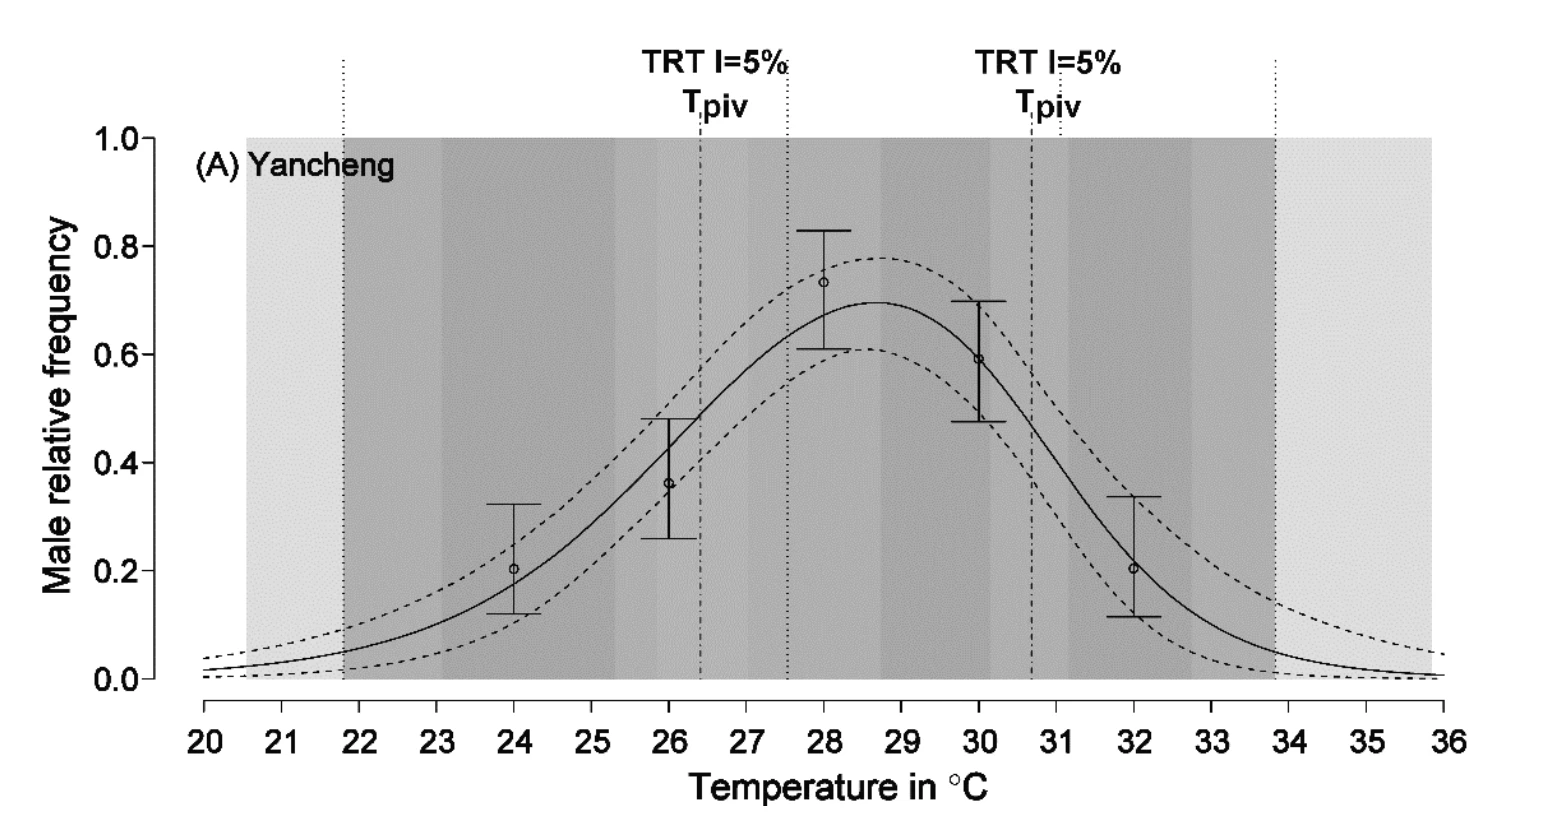
24도, 26도, 32도에서는 암컷이 유의미하게 많이 나왔고, 28도에서 수컷이 유의미하게 많았어요(수컷 비율 0.73). 30도에서도 수컷이 많긴 했지만(0.59) 통계적으로 유의미하진 않았어요. 그래프를 보면 곡선이 28-29도에서 약 0.7까지 올라갔다가 양쪽으로 내려가는 뚜렷한 산 모양이에요.
추저우(중부): 정점이 30도로 밀렸어요
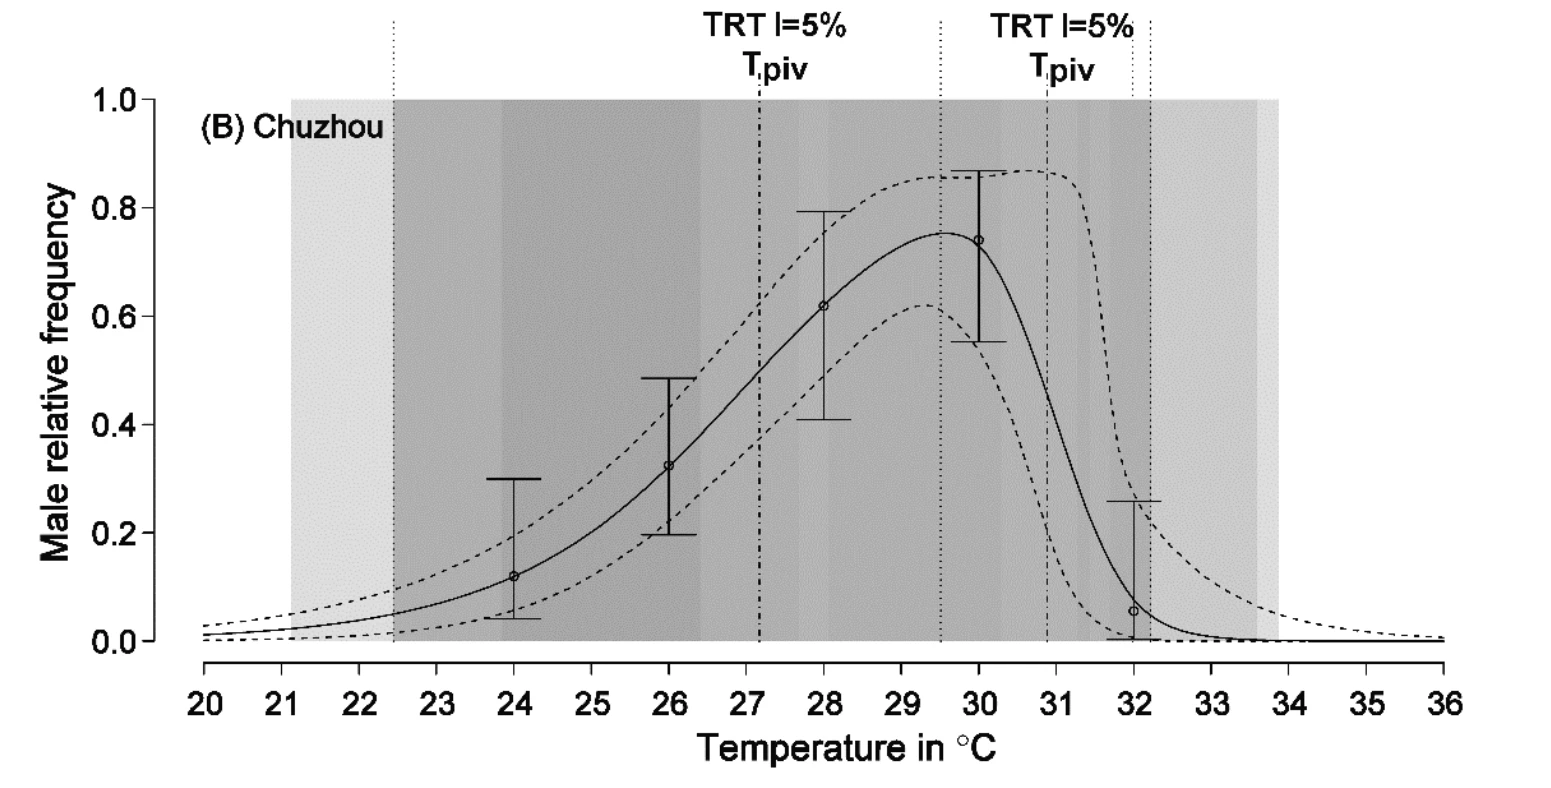
추저우도 24도, 26도, 32도에서 암컷 편향이 나왔는데, 수컷이 유의미하게 많았던 온도는 28도가 아니라 30도였어요(수컷 비율 0.74). 28도에서도 수컷이 조금 많았지만(0.62) 유의미하진 않았어요. 32도에서는 18마리 중 수컷이 딱 1마리로, 세 개체군 중 가장 극단적인 암컷 편향(0.06)이 나왔어요. 그래프에서 30도를 지나자마자 곡선이 절벽처럼 떨어지는 게 보여요.
원저우(남부): 넓은 구간에서 성비가 치우치지 않았어요
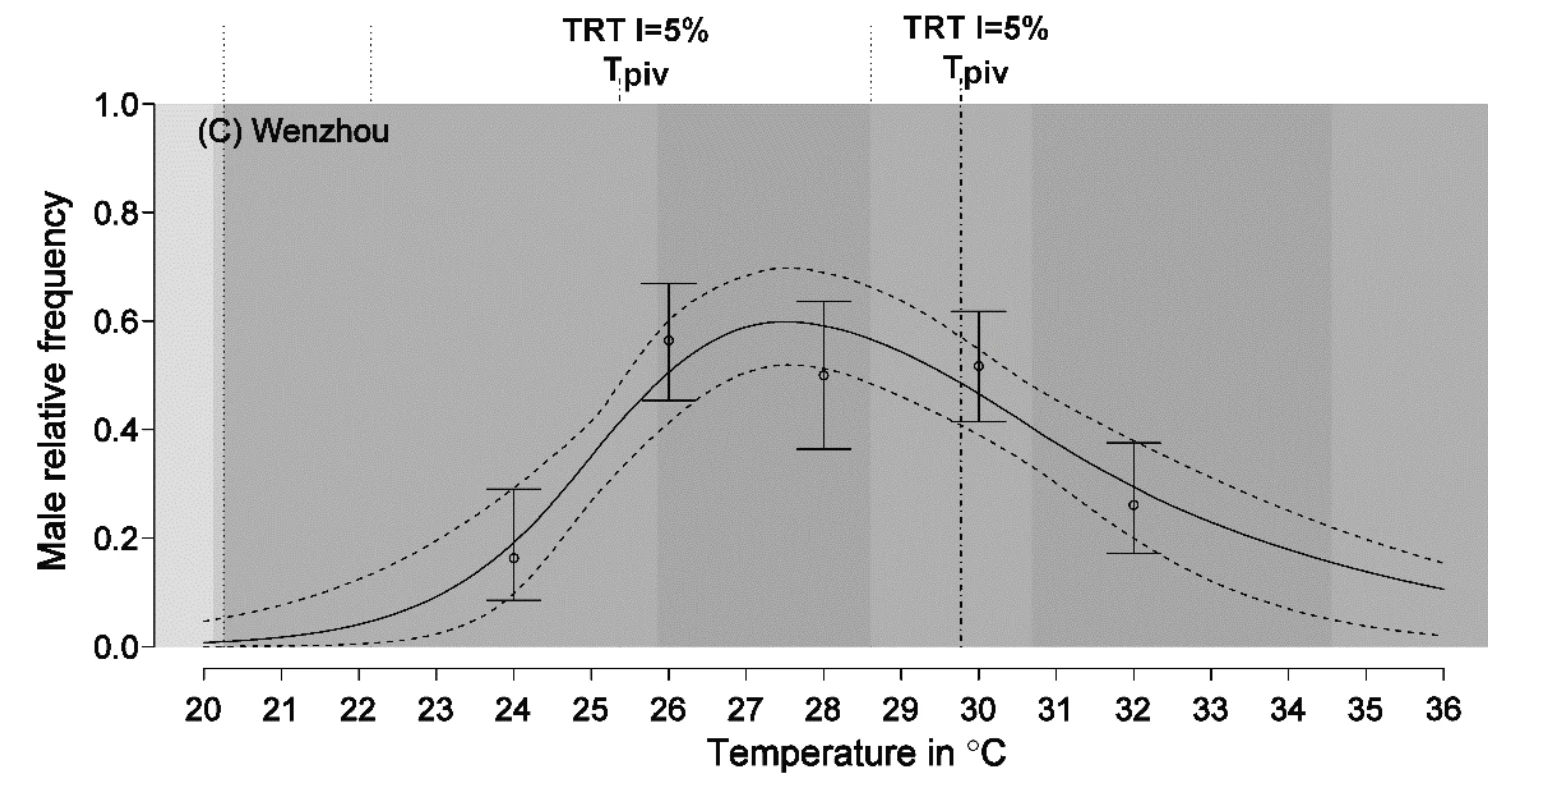
원저우는 완전히 달랐어요. 암컷이 유의미하게 많았던 온도는 양 끝인 24도와 32도뿐이고, 26도, 28도, 30도에서는 성비가 1대1에서 유의하게 벗어나지 않았어요(수컷 비율 각각 0.56, 0.50, 0.52). 세 온도 모두 p값이 0.25를 넘었어요. 1대1이라는 것이 입증됐다는 뜻은 아니고, 1대1에서 벗어났다고 볼 근거가 없었다는 뜻이에요.
그래프를 세 개 나란히 놓고 보면 차이가 확실해요. 옌청과 추저우 곡선은 뾰족한 산인데, 원저우 곡선은 납작하게 눌린 언덕이에요. 정점조차 0.6에 못 미쳐요. 다시 말해 원저우 개체군은 이 실험에서 조사한 24도부터 32도 사이에서는 수컷이 크게 몰리는 처리가 없었어요.
결과 4: 전환온도와 전환온도범위
곡선에서 뽑아낸 두 지표를 보면 세 개체군의 차이가 숫자로 드러나요. 아래는 원문 Table 3의 값이에요(베이지안 MCMC, 로지스틱 모형).
| 개체군 | 지표 | 암컷→수컷(FM) 중앙값 | FM 95% 구간 | 수컷→암컷(MF) 중앙값 | MF 95% 구간 |
|---|---|---|---|---|---|
| 옌청(북부) | Tpiv(도) | 26.4 | 25.8-27.0 | 30.7 | 30.2-31.2 |
| 옌청(북부) | TRT(도) | 9.3 | 6.7-11.6 | 6.3 | 4.2-10.0 |
| 추저우(중부) | Tpiv(도) | 27.2 | 26.4-28.1 | 30.9 | 30.3-31.8 |
| 추저우(중부) | TRT(도) | 9.6 | 6.4-11.7 | 2.6 | 0.6-6.3 |
| 원저우(남부) | Tpiv(도) | 25.7 | 25.1-26.4 | 30.0 | 29.3-30.7 |
| 원저우(남부) | TRT(도) | 8.1 | 4.7-11.5 | 10.9 | 8.5-19.4 |
Tpiv만 따로 그려 보면 이래요.
여기서 세 가지를 읽어낼 수 있어요.
첫째, 중앙값 기준으로 저위도 원저우의 두 Tpiv가 모두 가장 낮아요. FM Tpiv는 25.7도로 옌청(26.4도)과 추저우(27.2도)보다 낮고, MF Tpiv도 30.0도로 옌청(30.7도)과 추저우(30.9도)보다 낮아요. 더 따뜻한 곳에 사는 개체군인데 성비가 뒤집히는 온도는 오히려 더 낮은 거예요.
둘째, 수컷이 우세한 온도 구간의 위치가 개체군마다 달라요. 옌청은 26.4도부터, 추저우는 27.2도부터 수컷 쪽으로 넘어가는데, 원저우는 25.7도부터 넘어가요. 서식지 평균 온도(빨간 점선)를 함께 보면, 옌청의 25.0도는 자기 개체군의 FM Tpiv 바로 아래에 있고 원저우의 27.8도는 두 Tpiv 사이 한가운데에 있어요.
셋째, TRT의 방향이 앞뒤로 뒤집혀요. 암수가 섞여 나오는 구간의 폭을 보면, 앞쪽(FM) TRT는 고위도인 옌청(9.3도)과 추저우(9.6도)가 원저우(8.1도)보다 조금 넓어요. 그런데 뒤쪽(MF) TRT는 완전히 반대예요. 원저우가 10.9도로 가장 넓고, 추저우는 겨우 2.6도예요. 추저우 그래프에서 30도 지나 곡선이 절벽처럼 떨어졌던 게 바로 이 좁은 MF TRT예요. 다만 이 값들은 모두 중앙값이고 95% 구간은 서로 겹치는 부분이 있어요(예를 들어 MF TRT는 원저우 8.5-19.4도, 옌청 4.2-10.0도). 논문도 개체군 사이의 사후분포를 직접 검정하지는 않았으니, 중앙값 차이만으로 개체군 간 차이가 확정됐다고 읽지는 않는 게 좋아요.
논문은 이 뒤집힌 패턴을 이렇게 해석해요. 옌청에서 잰 둥지 후보 자리의 온도는 자기 개체군의 FM TRT 안에 들어갈 가능성이 높고, 원저우에서 잰 온도는 자기 개체군의 MF TRT 근처에 있어요. 각 개체군이 실제로 겪는 온도대 부근에서 TRT가 넓어진 패턴일 수 있다고 저자들은 해석해요. 다만 실제 둥지 온도를 재지 못했기 때문에 이것이 적응의 결과라고 확정할 수는 없어요.
논문 안에서 숫자가 어긋나는 대목
읽다가 눈에 걸린 부분이 있어서 밝혀 둘게요. 논문 결과 절 본문은 원저우의 Tpiv를 “FM Tpiv = 25.1도, MF Tpiv = 29.3도”라고 적었어요. 그런데 같은 논문 Table 3을 보면 이 두 숫자는 중앙값이 아니라 95% 베이지안 신용구간(credible interval)의 아래쪽 끝인 2.5% 분위수예요. 중앙값은 25.7도와 30.0도예요. 옌청과 추저우는 본문 숫자가 중앙값과 거의 같은데(26.5 대 26.4, 30.7 대 30.7, 27.2 대 27.2, 30.8 대 30.9) 원저우만 분위수를 가져온 셈이에요. Figure 1(C)의 세로 일점쇄선도 Table 3의 중앙값과 부합해 보여요.
그래서 이 글의 표와 그림은 모두 Table 3의 중앙값을 기준으로 썼어요. 다행히 어느 값을 쓰든 “저위도 원저우의 Tpiv가 가장 낮다”는 결론 자체는 바뀌지 않아요.
이 결과가 왜 흥미로운가: 피셔 이론의 기대와는 반대였어요
여기서부터가 논의예요. 조금 헷갈리는 대목이라 차근차근 갈게요.
TSD 종의 전환온도가 어디쯤에 자리 잡을지를 예측하는 고전적인 논리가 피셔의 성비 이론(Fisherian theory of sex ratio evolution)이에요. 전문적으로는 빈도 의존 선택(frequency-dependent selection)이 개체군 성비를 1대1로 밀어붙인다는 이론인데, 쉽게 말하면 이런 이야기예요. 어떤 개체군에 수컷이 지나치게 적으면 수컷으로 태어난 개체가 짝짓기 기회를 독차지하게 되고, 그러면 수컷을 낳는 유전적 성향이 유리해져서 다음 세대에는 수컷이 늘어나요. 반대도 마찬가지고요. 암수 한 마리를 만드는 데 드는 비용이 비슷하다면, 결국 성비는 반반 근처로 되돌아와요.
이 논리를 TSD 종에 적용하면, 전환온도는 그 개체군의 둥지가 실제로 겪는 온도 근처에 자리 잡아야 해요. 전환온도가 그 개체군이 실제로 겪는 둥지 온도 분포와 적절히 맞물려야, 개체군 전체에서 태어나는 자손의 성비가 한쪽으로 지나치게 치우치지 않으니까요. 그러면 더운 저위도에 사는 개체군일수록 전환온도가 더 높아야 한다는 예측이 나와요.
그런데 이 연구의 결과는 정반대였어요. 가장 따뜻한 원저우(서식지 평균 27.8도)의 전환온도가 가장 낮았거든요.
논문은 이와 다른 설명도 함께 소개해요. 고위도 암컷이 오히려 햇볕에 노출된 더 더운 자리를 골라 알을 낳기 때문에 고위도 개체군의 전환온도가 높아진다는 설명이에요. 이 연구의 결과는 이쪽과 방향이 맞아요.
여기서 한 가지 더 짚고 갈게요. 논문 서론에서 연구팀이 세운 가설은 “고위도 개체군의 Tpiv가 저위도 개체군보다 높다“였고, 결과는 이 가설과 방향이 같아요. 그런데 논의 첫머리에는 “이 결과가 그 가설과 배치된다”고 적혀 있어요. 바로 다음 문장에서는 “일부 거북에서 보고된 것과 비슷한 위도별 변이”라며 서론에서 “고위도에서 Tpiv가 더 높다”는 연구로 소개했던 문헌들을 드는데, 그러면 앞 문장과 서로 맞지 않아요. 문맥을 보면 논의에서 말하는 “가설”은 피셔 이론에서 나오는 기대(더운 저위도일수록 Tpiv가 높아야 한다)를 가리키는 것으로 읽히는데, 서론에 적힌 가설 문장과는 방향이 반대예요. 데이터 자체가 흔들리는 문제는 아니고 서술이 어긋난 대목이라, 읽을 때 참고하시라고 적어 둬요.
저자들이 든 세 가지 가능성
그러면 왜 개체군마다 이렇게 다를까요? 논문은 특히 중간 온도(28도 근처)에서 원저우만 반반이 나온 이유에 대해 세 가지 가능성을 들어요. 다만 어느 것도 이 연구에서 검증하지는 못했어요.
| 가능성 | 내용 | 이 연구에서 확인했나 |
|---|---|---|
| 이형 성염색체의 검출 여부 | 어떤 개체군에서는 이형 성염색체가 보고됐고 어떤 개체군에서는 검출되지 않았으니, 그 차이가 온도에 대한 반응 차이로 이어졌을 수 있음 | 아니요. 세 개체군의 핵형을 조사하지 않았어요 |
| 모체 유래 난황 스테로이드 호르몬 | 엄마가 알의 난황에 넣어 준 스테로이드 호르몬이 부화 온도와 상호작용해 성비를 바꾼다는 보고가 있고, 같은 종에서 특히 28도 근처에서 그 효과가 컸음 | 아니요. 이 연구에서 호르몬을 측정하지 않았어요 |
| 온도 변동 폭 | 고위도 개체군의 서식지가 더 크게 흔들리는데(일교차 7.4도 대 5.3도), 변동 폭이 성비에 영향을 준다는 보고가 여럿 있음 | 부분적으로만. 서식지 온도는 쟀지만 인큐베이션은 일정 온도로만 했어요 |
세 번째 항목과 관련해 논문이 드는 비교 사례가 재미있어요. 호주의 스노우스킨크(Niveoscincus ocellatus)를 다룬 2010년 Nature 논문에서는 저지대 개체군이 TSD, 고지대 개체군이 GSD로 갈렸어요. 춥고 변동이 큰 고지대에서는 유전적 성 결정이 유리하다는 결과죠. 그런데 도마뱀붙이는 그 반대로 보여요. 기후가 상대적으로 안정된 저위도 원저우 쪽이 26도에서 30도까지 거의 반반의 성비를 내면서 오히려 GSD에 가까운 모습을 보였거든요. 논문의 표현을 그대로 옮기면 “GSD 패턴에 더 가까워 보인다(seems to be closer to the GSD pattern)”예요.
그래서 크레는 어떨까
이제 처음 질문으로 돌아올 차례예요.
크레는 성염색체(ZZ/ZW)로 성별이 정해져요. 갬블 연구팀의 RAD-seq 결과가 그걸 보여줬어요. 이와는 별개로, 크레 배아의 생식소가 언제 형태적으로 갈라지는지도 연구돼 있어요. 크레 배아의 생식소를 조직학적으로 관찰한 람스포치에하(Rams-Pociecha) 연구팀이 2023년 12월에 발표한 논문에서는, 크레의 생식소가 산란 후 10일째(발생 단계 S32)가 되어야 피질 두께 차이로 암수 분화 신호가 나타났어요. 자세한 이야기는 크레 배아의 생식소, 난소와 정소는 언제부터 갈라질까에 있어요.
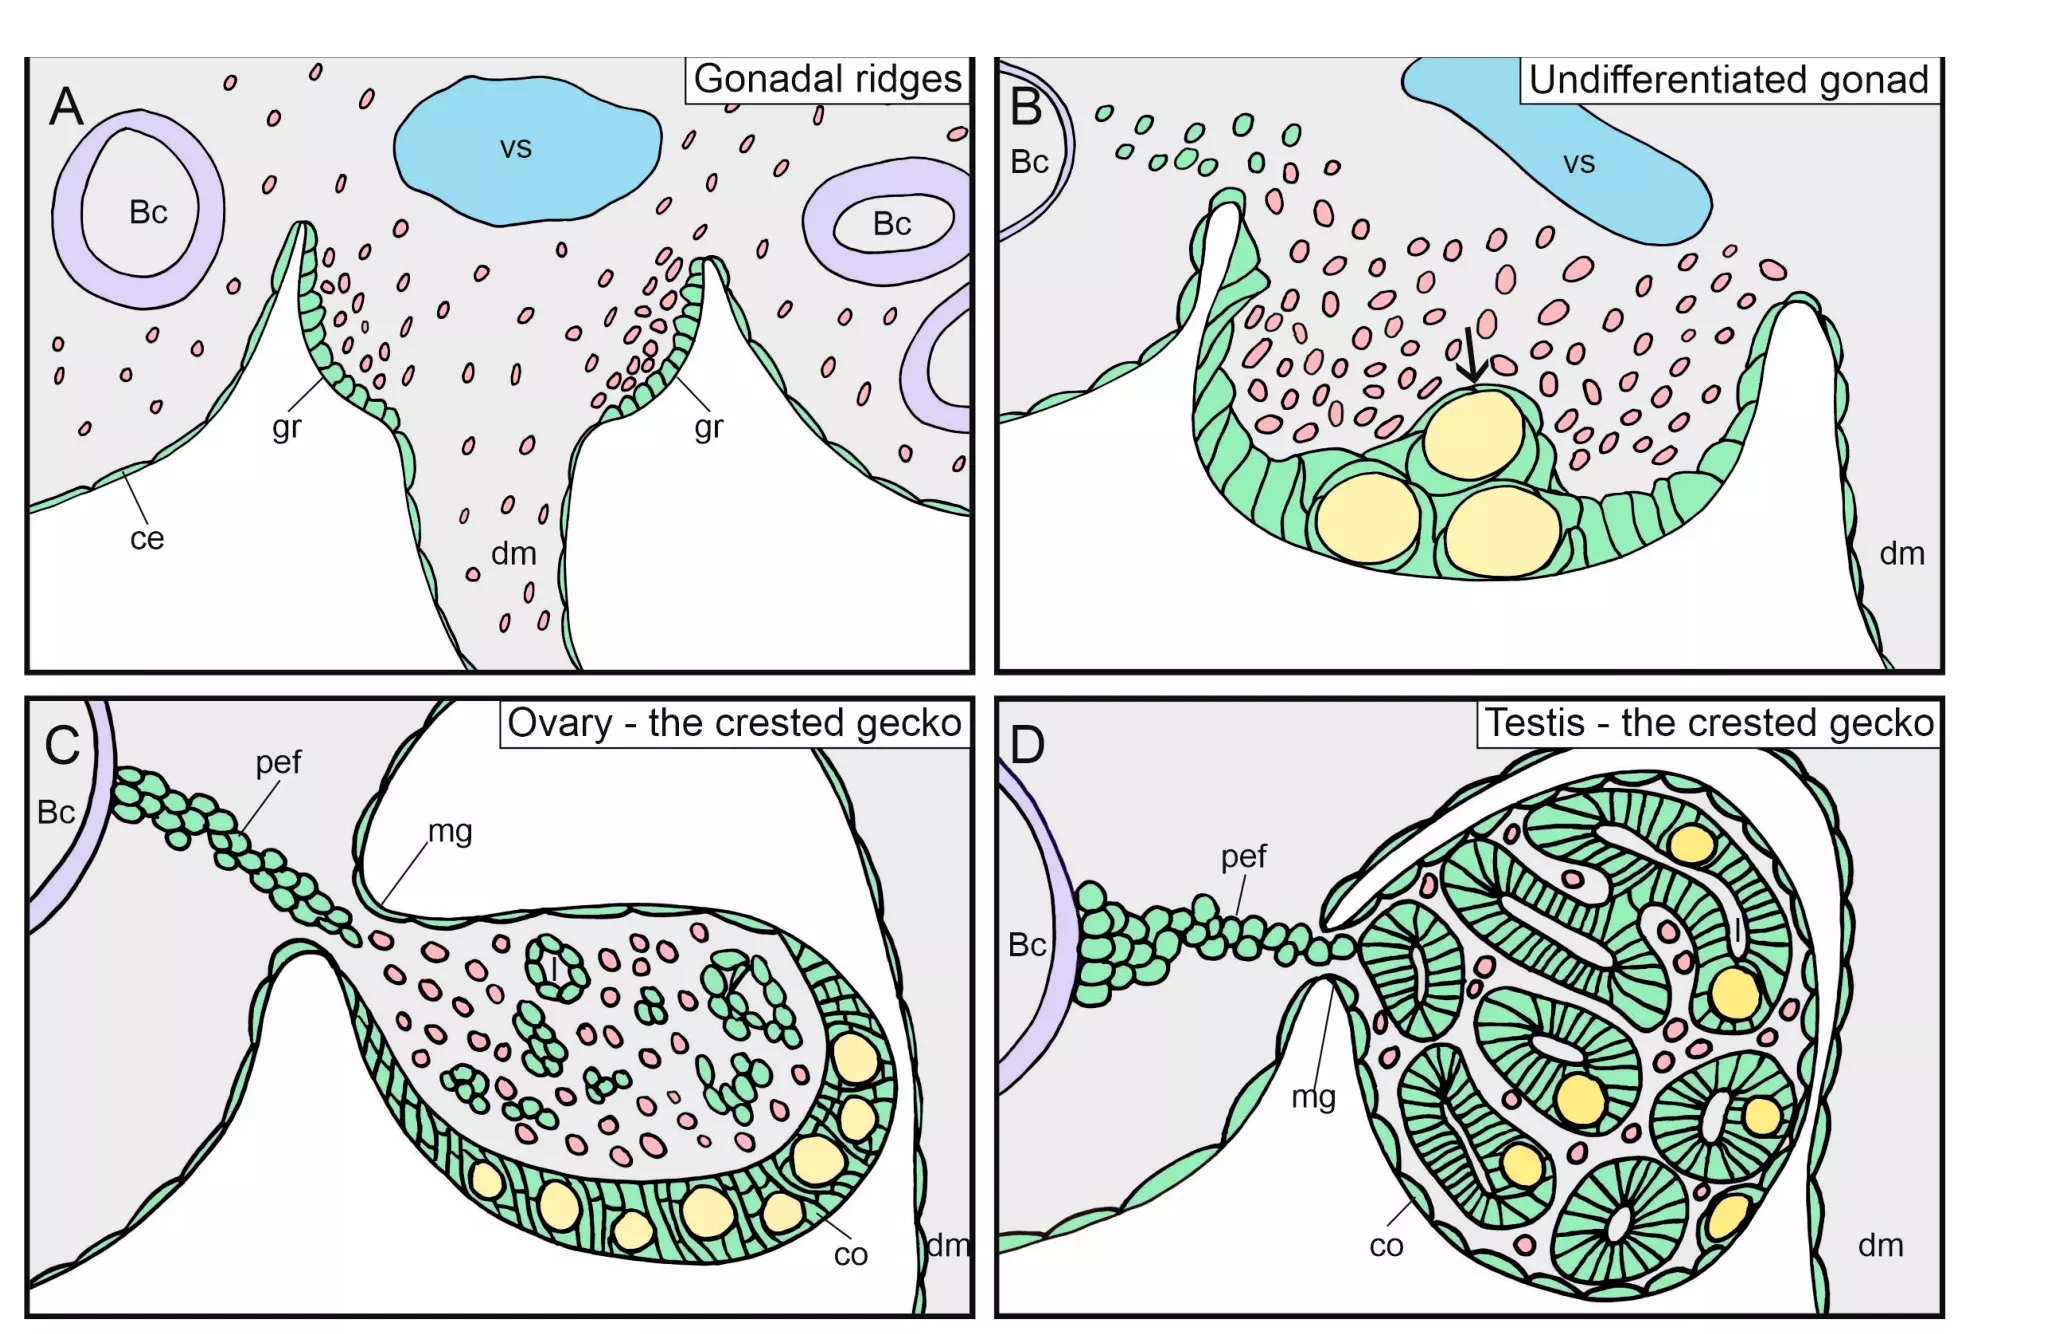
그러면 크레와 도마뱀붙이를 나란히 놓고 정리해 볼게요.
| 항목 | 크레(Correlophus ciliatus) | 도마뱀붙이(Gekko japonicus) |
|---|---|---|
| 과 | Diplodactylidae | Gekkonidae |
| 성 결정 방식 | 유전적 성 결정(ZZ/ZW) | 온도의존성 성 결정(FMF형) |
| 성염색체 | ZW인데 Z와 W의 생김새가 거의 같은 동형(homomorphic)이라 핵형 검사로는 구분되지 않음 | 개체군에 따라 보고가 갈림(일본 개체군은 이형, 난징 개체군은 이형 없음) |
| 알 껍질 | 말랑한 가죽질 | 단단한 경질란 |
| 부화 온도가 성별을 바꾸는가 | 온도와 성비의 관계를 직접 본 자료는 동료 심사를 거치지 않은 학위논문 두 편뿐이고, 그 자료만으로는 온도와 성비 사이의 일관된 관계를 확인할 수 없으며, 온도로 성별이 바뀐다는 입증도 없어요 | 부화 온도에 따라 부화 개체의 성비가 달라지고, TSD로 보고돼 있어요(정도는 개체군마다 달라요) |
여기서 실용적인 결론이 나와요. 현재 확인된 근거만으로는 크레 알의 부화 온도를 조절해 원하는 성별을 얻을 수 있다고 말할 수 없어요. 크레가 ZZ/ZW 성염색체를 갖는다는 증거는 있고, 위에서 말한 두 편의 학위논문처럼 온도와 성비의 관계를 크레에서 직접 살펴본 자료도 있지만, 그 자료들만으로는 온도와 성비 사이에 일관된 관계를 확인할 수 없고 온도가 크레의 성 결정을 좌우한다는 것이 입증된 것도 아니에요. 온도로 성비를 조절할 수 있다는 이야기가 브리더 커뮤니티에서 가끔 도는데, 그렇게 할 수 있다고 볼 근거는 지금으로서는 없다고 보는 편이 정확해요. 이 이야기는 크레 최적 부화 온도는 정말 24도일까에서도 짚었어요.
다만 이 논문을 읽고 나서 한 가지는 조심스럽게 덧붙이고 싶어요. “성염색체가 있으니 온도는 성별과 아무 상관이 없다”는 문장이 모든 종에서 자동으로 참인 건 아니에요. 이 논문이 인용하는 대로, 성염색체와 온도 효과가 한 종 안에서 공존하는 사례가 도마뱀에서 보고되고 있고, 도마뱀붙이 자체가 그런 후보로 거론돼요. 성염색체와 온도 사이의 줄다리기에서 어느 쪽이 이기느냐는 종마다, 심지어 개체군마다 다를 수 있어요.
크레의 성 결정에 대해 지금까지 확인된 직접 증거는 RAD-seq이 보여 준 ZZ/ZW 체계 하나뿐이고, 온도가 개입한다는 증거는 아직 없어요. 그러니 현재로서 정확한 답은 “크레의 성별이 부화 온도로 바뀐다는 것은 확인되지 않았다”예요. “바뀌지 않는다는 것이 확인됐다”와는 다른 말이에요. 그리고 그 답의 근거가 “ZW니까 당연히”가 아니라 “그런 실험 결과가 아직 없으니까”라는 점도 구분해 두면 좋겠어요. 크레의 부화 온도는 성별이 아니라 부화까지 걸리는 기간, 부화체의 상태, 나중의 온도 내성 쪽에서 의미가 있어요.
TSD 연구는 지금도 계속 나오고 있어요. 예를 들어 스트라코바(Straková) 연구팀이 2024년 Journal of Experimental Zoology Part A에 발표한 논문에서는 게코 3종에서 새로 TSD를 확인했는데, 그중 Pachydactylus tigrinus는 알이 살아남을 수 있는 온도 전 구간에서 암컷만 심하게 몰려 나와서 Tpiv 자체를 정의할 수 없었어요. 논문 제목이 “Pivotal temperature is not for everyone(전환온도가 모든 종에 있는 건 아니다)”인 이유예요. 게코의 성 결정은 아직 정리가 끝나지 않은 영역이에요.
이 논문이 답하지 못한 것
마지막으로 이 연구의 한계를 정리해 둘게요. 저자들이 직접 밝힌 것과 제가 읽으며 눈에 띈 것을 함께 적었어요.
- 진짜 둥지 온도 자료가 없어요. 이 종은 개인 건물 틈에 알을 낳아서 야외에서 둥지를 찾을 수 없었어요. 그래서 임신 암컷이 발견된 건물 틈에 기록계를 넣어 “둥지가 될 만한 곳”의 온도를 대신 썼어요. 논문은 이 때문에 “고위도 암컷이 더 따뜻한 자리를 골라 산란하는가”라는 핵심 가설을 검증할 수 없었다고 명시해요.
- 추저우의 서식지 온도 자료가 통째로 없어요. 설치한 기록계 10개를 하나도 회수하지 못했어요. 그래서 서식지 온도 비교는 옌청과 원저우 두 곳으로만 이뤄졌어요.
- 세 개체군의 핵형을 조사하지 않았어요. 이형 성염색체의 검출 여부가 개체군 차이의 원인일 수 있다고 논문 스스로 제기했지만, 이 연구에서는 확인하지 않았어요. 후속 과제로 남겨 뒀어요.
- 일정 온도로만 부화시켰어요. 실제 둥지는 하루 동안 온도가 오르내리는데, 이 실험은 24, 26, 28, 30, 32도의 고정 온도를 썼어요. 온도 변동이 성비에 영향을 준다는 보고가 여럿 있으니, 야생 성비를 그대로 예측하는 데는 한계가 있어요.
- 개체군별 표본 수가 고르지 않아요. 임신 암컷이 옌청 181마리, 원저우 210마리인데 추저우는 80마리였고, 성비 표에서도 추저우의 각 온도별 개체 수가 20마리 안팎으로 다른 두 곳보다 적어요. 추저우 32도 처리는 18마리뿐이었어요.
- 저 자신이 확인하지 못한 것도 있어요. 일본 개체군의 이형 성염색체와 난징 개체군의 핵형에 관한 서술은 각각 1985년과 1986년 논문에 근거하는데, 이 두 편은 전문을 열어 볼 수 없었어요(1986년 논문은 중국어 학술지 Acta Herpetologica Sinica에 실렸어요). 그래서 이 글에서는 그 내용을 “Li 연구팀이 그렇게 인용하고 있다”는 수준으로만 적었어요. 도쿠나가 1985년 논문의 온도별 성비 수치는 초록으로 확인했어요.
마무리
한 종 안에서도 온도에 따른 성비 반응이 이렇게 달라질 수 있다는 게 이 논문이 보여 주는 그림이에요. 같은 도마뱀붙이인데 북쪽 개체군은 28도에서 수컷이 몰리고, 남쪽 개체군은 26도부터 30도까지 성비가 1대1에서 유의하게 벗어나지 않았어요. 그리고 그 남쪽 개체군의 온도별 성비 반응을 두고 논문은 “GSD 패턴에 더 가까워 보인다”고 적었어요. 실제로 GSD인지 확인한 것은 아니에요.
크레는 그 반대쪽에 자리한 계통이에요. 도마뱀과 뱀의 공통 조상은 온도로 성별을 정했던 것으로 복원되는데, 크레로 이어지는 계통은 그 진화 과정 어딘가에서 ZW 방식의 유전적 성 결정을 갖게 됐어요. 그리고 지금까지 온도가 크레의 성별을 바꾼다는 증거는 확인되지 않았으니, 인큐베이터 온도로 성별을 조절할 수 있다고 기대할 근거도 없어요. 대신 온도는 얼마나 빨리 부화하는지, 어떤 상태로 나오는지에 영향을 주니, 그쪽에 신경을 쓰는 게 맞아요.
성 결정 이야기가 흥미로우셨다면 크레의 성별은 엄마가 정한다?와 크레 배아의 생식소, 난소와 정소는 언제부터 갈라질까를 이어서 읽어 보셔도 좋아요. 염색체와 유전자 이야기가 낯설다면 크레 모프 이야기를 하기 전에: 딱 한 번만 훑고 가는 기초 유전학이 도움이 될 거예요.
이 글은 아래 원 논문을 직접 읽고 참고문헌까지 확인해서 정리했어요.
출처: Li S, Xu Z, Luo L, Ping J, Zhou H, Xie L, Zhang Y. “Latitudinal Variation in the Pattern of Temperature-Dependent Sex Determination in the Japanese Gecko, Gekko japonicus.” Animals, 2022;12(8):942. https://doi.org/10.3390/ani12080942
본문의 그래프 3장은 위 논문 Figure 1의 세 패널을 그대로 가져왔어요.
함께 확인한 자료:
- Tokunaga S. “Temperature-Dependent Sex Determination in Gekko japonicus (Gekkonidae, Reptilia).” Development, Growth & Differentiation, 1985;27(2):117-120. DOI
- Ding GH, Yang J, Wang J, Ji X. “Offspring sex in a TSD gecko correlates with an interaction between incubation temperature and yolk steroid hormones.” Naturwissenschaften, 2012;99:999-1006. DOI
- Gamble T, Coryell J, Ezaz T, Lynch J, Scantlebury DP, Zarkower D. “Restriction Site-Associated DNA Sequencing (RAD-seq) Reveals an Extraordinary Number of Transitions among Gecko Sex-Determining Systems.” Molecular Biology and Evolution, 2015;32(5):1296-1309. DOI
- Rams-Pociecha I, Mizia PC, Piprek RP. “Histological Analysis of Gonadal Ridge Development and Sex Differentiation of Gonads in Three Gecko Species.” Biology, 2024;13(1):7(2023년 12월 22일 온라인 게재). DOI
- Pen I, Uller T, Feldmeyer B, Harts A, While GM, Wapstra E. “Climate-driven population divergence in sex-determining systems.” Nature, 2010;468:436-438. DOI
- Hulin V, Delmas V, Girondot M, Godfrey MH, Guillon JM. “Temperature-dependent sex determination and global change: Are some species at greater risk?” Oecologia, 2009;160:493-506. DOI
- Straková B, Kubička L, Červenka J, Kratochvíl L. “Pivotal temperature is not for everyone: Evidence for temperature-dependent sex determination in three gecko species.” Journal of Experimental Zoology Part A, 2024;341(5):597-605. DOI
- Kim DI, Park IK, Kim JS, Ota H, Choi WJ, Kim IH, Park D. “Spring and summer microhabitat use by Schlegel’s Japanese gecko, Gekko japonicus (Reptilia: Squamata: Gekkonidae), in urban areas.” Animal Cells and Systems, 2019;23(1):64-70(2018년 12월 4일 온라인 게재). DOI
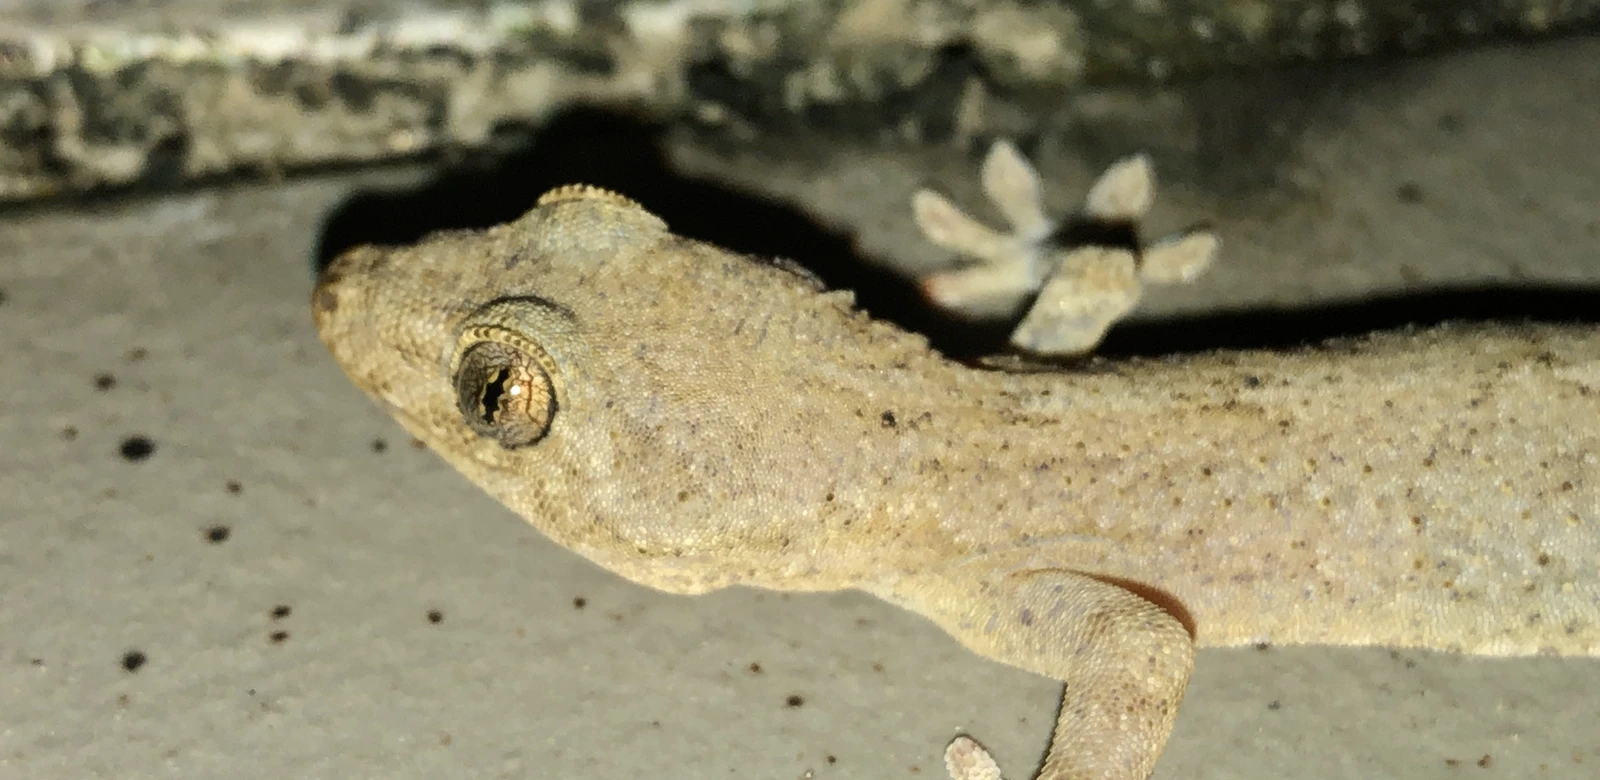
사진 출처: Gekko japonicus on the wall.jpg by KKPCW, CC BY-SA 4.0 · Head of Gekko japonicus.jpg by KKPCW, CC BY-SA 4.0 · Gecko waiting for insects under a streetlight – 1.jpg by Kyu3a, CC BY-SA 4.0. 새끼 크레 사진은 직접 촬영했어요.


2 Comments