알을 몸속에 오래 품는 도마뱀: 난태생은 어떻게 진화했을까
먼저 밝혀 둘 것: 이 논문은 크레 이야기가 아니에요
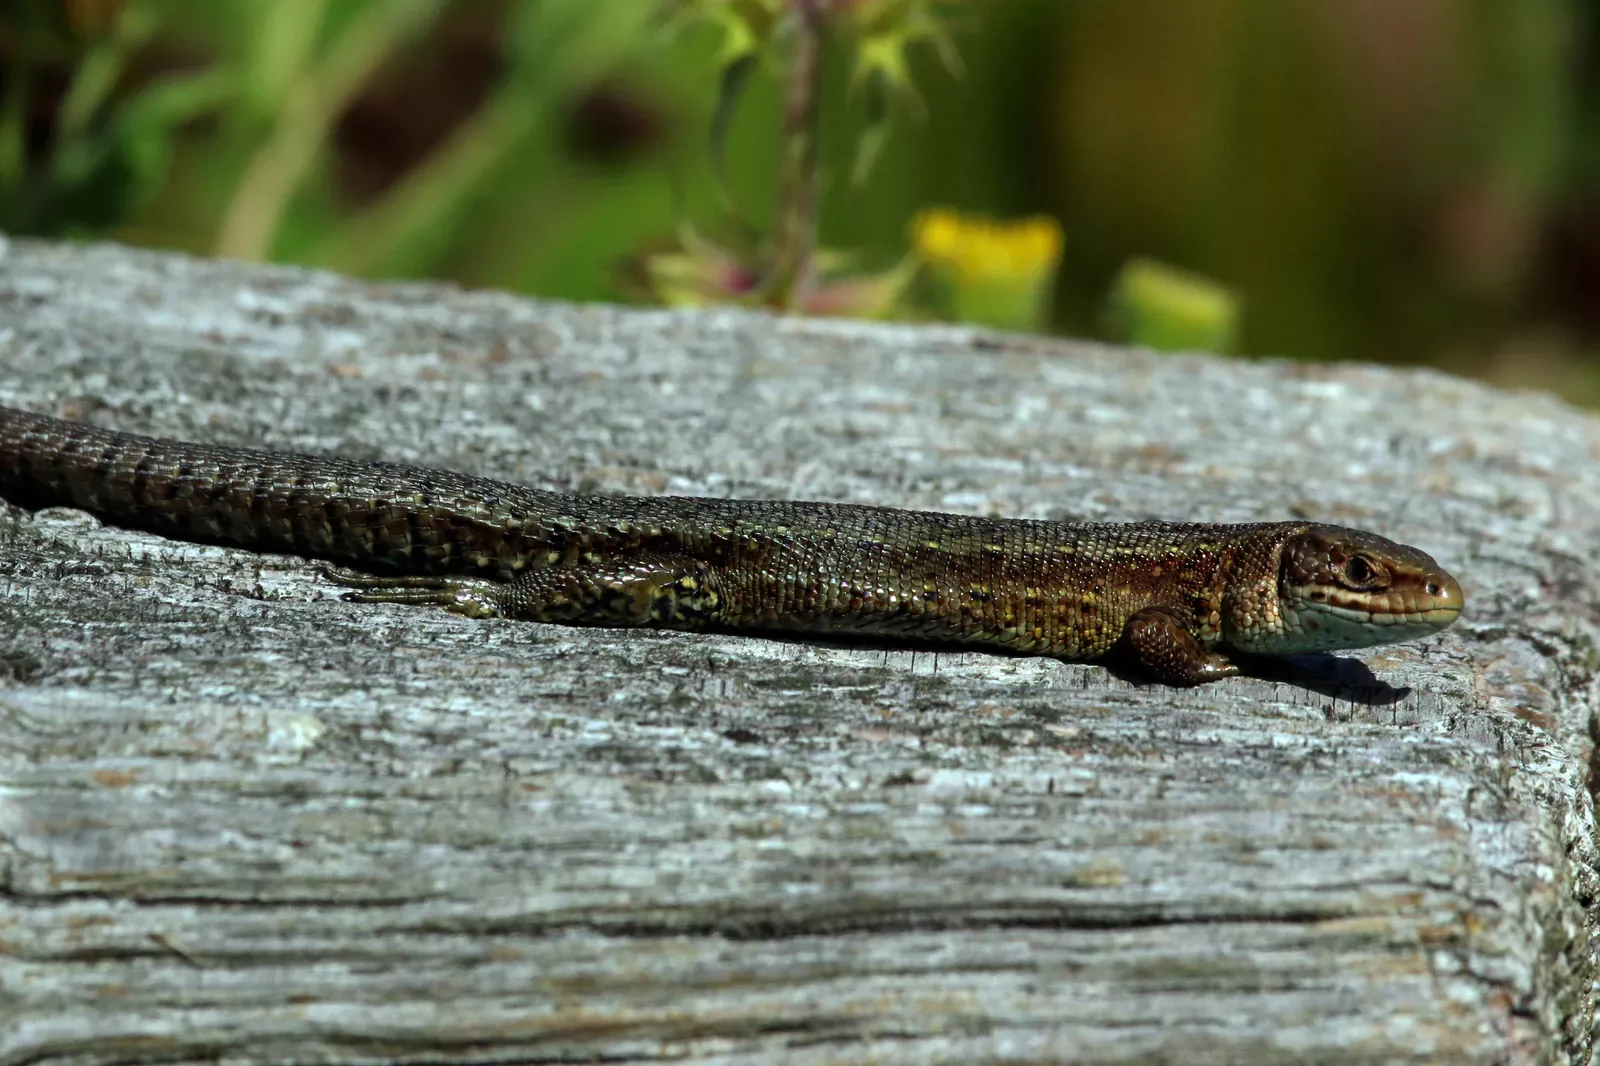
이 글에서 다루는 논문의 주인공은 크레(크레스티드 게코, 속눈썹도마뱀붙이·볏도마뱀붙이, 학명 Correlophus ciliatus)가 아니에요. 게코도 아니고요. 유럽과 아시아에 널리 사는 도마뱀과(Lacertidae)의 Zootoca vivipara라는 작은 도마뱀이에요. 크레가 속한 발가락도마뱀붙이과(Diplodactylidae)와는 계통상 꽤 멀리 떨어진 무리고, 몸집도 생활 방식도 사육 조건도 전혀 달라요. 지금까지 이 블로그에서 다룬 논문 중 크레와 가장 먼 종이에요.
그런데도 이 논문을 가져온 이유가 있어요. 우리는 크레가 알을 낳으면 그 알을 꺼내 인큐베이터에 넣고 온도를 맞춰 줘요. 너무 당연해서 왜 그렇게 하는지 잘 생각하지 않게 되는 절차예요. 이 논문은 그 질문을 정반대 방향에서 던져요. 어미가 알을 몸속에 계속 품고 있으면 무슨 일이 벌어질까요? 어미의 체온이 인큐베이터 다이얼 역할을 한다면, 어미는 그 다이얼을 몇 도에 맞출까요? 크레와는 상황이 정반대인 동물을 보면, 우리가 인큐베이터 앞에서 하는 일이 무엇인지 오히려 또렷하게 보여요.
논문 서지정보
| 항목 | 내용 |
|---|---|
| 제목 | Effects of incubation temperature on hatchling phenotypes in an oviparous lizard with prolonged egg retention: are the two main hypotheses on the evolution of viviparity compatible? |
| 저자 | Tania Rodríguez-Díaz, Félix González, Xiang Ji, Florentino Braña |
| 소속 | 스페인 오비에도 대학교 생물학과, 중국 난징사범대학교 생명과학원 |
| 저널 | Zoology 113권 1호 33-38쪽 (2010년) |
| 접수·게재 | 2009년 1월 22일 접수, 2009년 5월 11일 수정본 접수·게재 승인, 2010년 1월호 수록 |
| DOI | 10.1016/j.zool.2009.05.001 |
아래에서 출처를 “Rodríguez-Díaz et al. 2010″으로 밝힌 그림(Fig. 1-3)은 이 논문에서 가져온 것이고, 나머지 사진과 도해는 별도로 출처를 적어 뒀어요.
같은 종인데, 어떤 곳에서는 알을 낳고 어떤 곳에서는 새끼를 낳아요
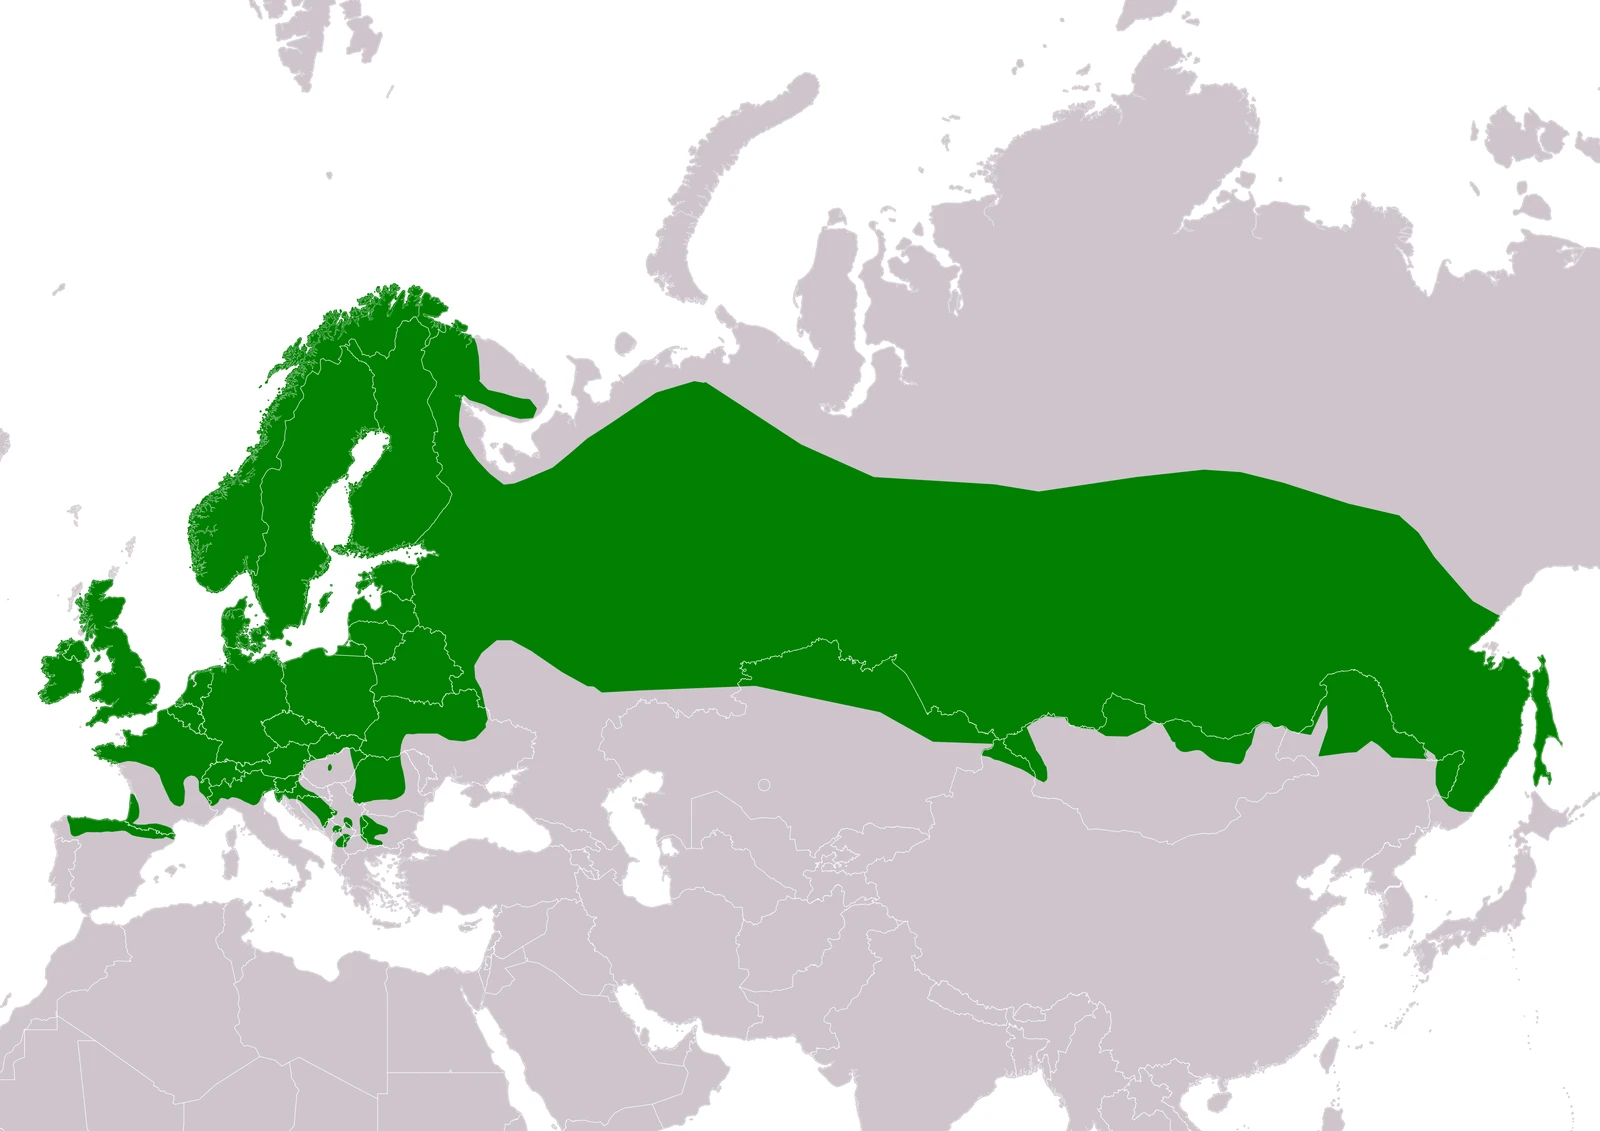
Zootoca vivipara는 이름부터가 “새끼를 낳는(vivipara)”이에요. 실제로 이 종이 사는 유라시아 대부분 지역의 개체군은 알을 몸 밖으로 내놓지 않고 몸속에서 다 키운 다음 새끼를 낳아요. 논문이 이 방식을 부르는 말은 태생(viviparity)이에요. 그런데 분포 범위의 남쪽 가장자리에는 난생(oviparity) 개체군이 남아 있어요. 알을 낳는다는 뜻이에요. 스페인 북부와 프랑스 남서부에 걸친 계통이 대표적이고, 슬로베니아·크로아티아·이탈리아 북동부 쪽에도 이와는 별개의 난생 계통이 알려져 있어요. 이 논문이 다루는 것은 앞쪽, 스페인 북부의 개체군이에요.
용어를 한 번 정리하고 갈게요. 이 말들이 헷갈리는 이유는 성격이 다른 두 축을 한 단어로 뭉뚱그리기 때문이에요.
| 무엇을 나누는 축인가 | 갈래 |
|---|---|
| 새끼를 어떤 형태로 내놓는가 | 난생(알로 낳음) / 태생(새끼로 낳음) |
| 배아 영양에서 무엇이 주된가 | 난황영양성(주로 알의 난황) / 모체영양성(수정 뒤 어미가 대 주는 몫이 큼) |
Zootoca vivipara의 태생 개체군은 첫 번째 축에서 태생이고, 두 번째 축에서 난황영양성이에요. 어미와 배아 사이에 산소와 물이 오가는 접촉면은 생기지만, 영양은 거의 전부 알의 난황에서 와요. 두 축이 서로 독립적이라 조합이 여럿 나오는데, 우리말에서는 이 조합을 흔히 난태생이라고 불러요. 널리 쓰이는 말이라 이 글에서도 그대로 쓸게요. 다만 엄밀하게는 “난황영양성 태생”이 정확한 표현이고, 논문은 그냥 태생이라고만 적는다는 점을 알고 읽어 주세요.
한 종 안에서 번식 방식이 이렇게 갈리는 현상을 종내 번식 이원성(intraspecific reproductive bimodality)이라고 불러요. 논문은 이 종이 도마뱀과 전체에서 이 현상을 보이는 유일한 종이라고 적어요. 양막류(파충류·조류·포유류를 아우르는 무리) 전체로 넓혀도 이런 종은 아주 드물어요. 한 종 안에 난생 계통과 난태생 계통이 함께 남아 있는 셈이라, 두 번식 방식의 진화적 관계를 들여다볼 드문 기회예요. 다만 어느 쪽이 조상이고 어느 쪽이 나중에 갈라져 나온 것인지는 아직 정리되지 않았어요. 바로 아래에서 다시 볼게요.
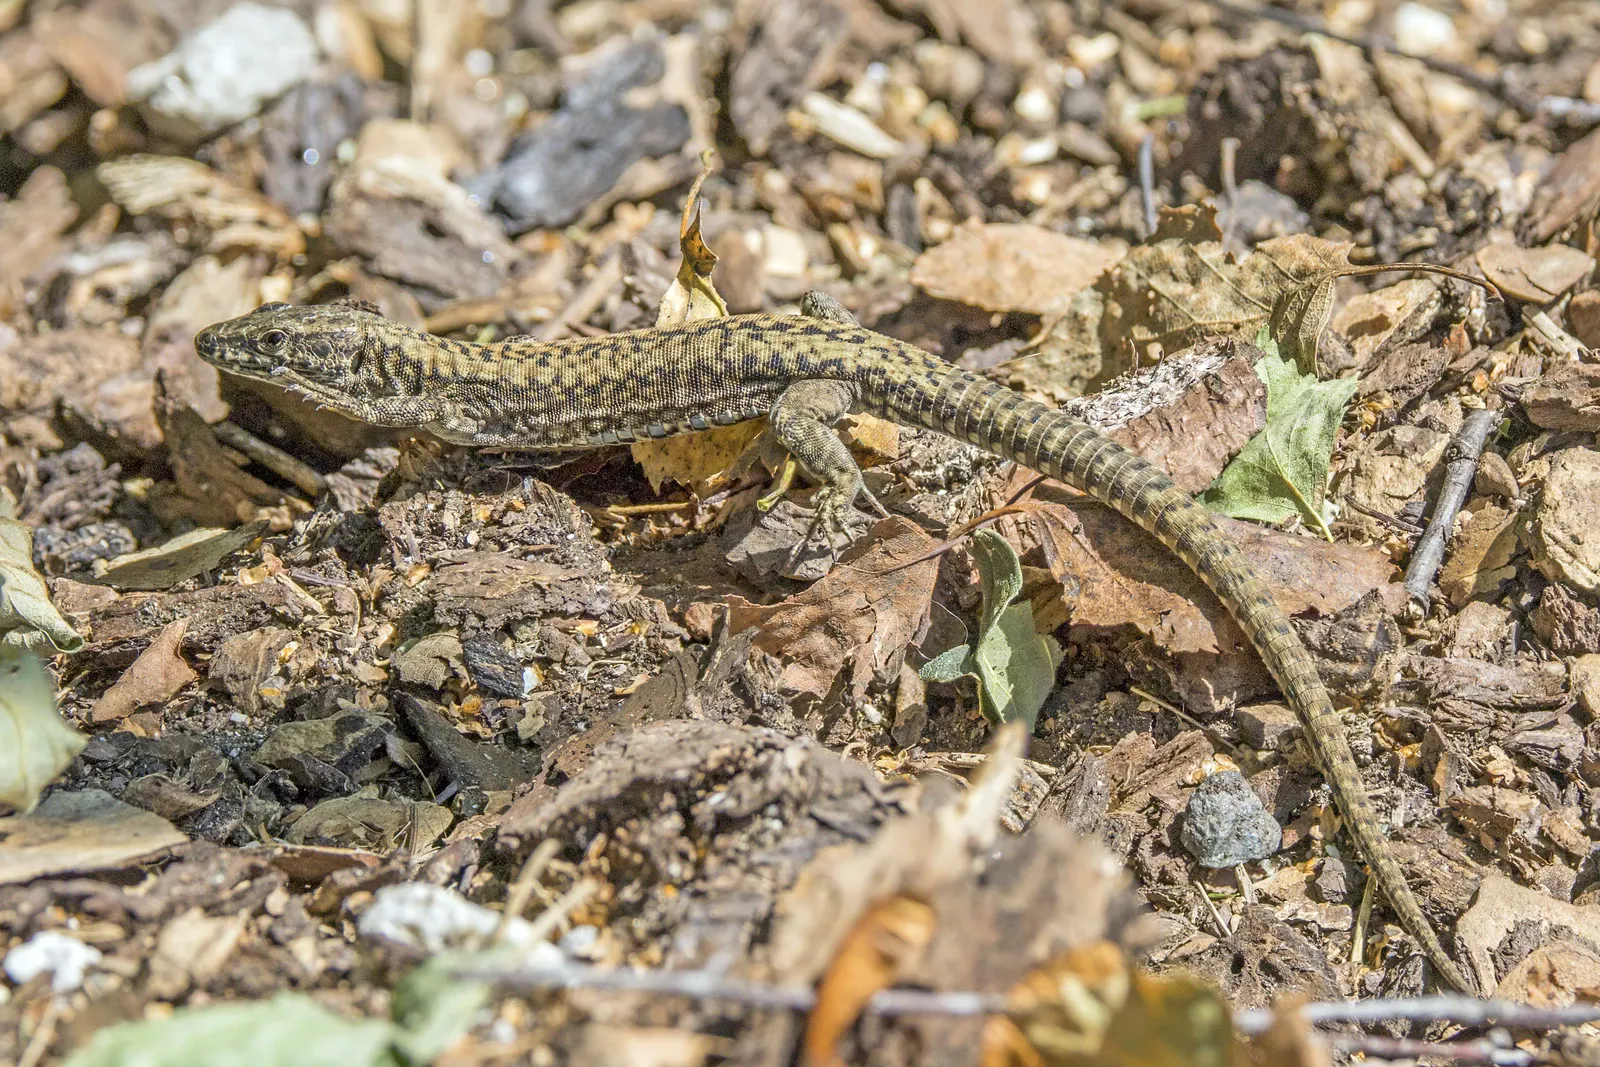
여기서 중요한 사실이 하나 더 있어요. 난생 개체군은 그냥 알을 낳는 게 아니라, 알을 아주 오래 몸속에 품고 있다가 낳아요. 이걸 알품기 연장(prolonged egg retention)이라고 해요. 새가 알 위에 앉아 품는 포란과는 다른, 알을 몸속에 그대로 갖고 있는 기간이 길어지는 현상이에요. 연구진이 산란 직후 알을 하나씩 갈라 배아를 확인해 보니, 배아는 이미 Dufaure와 Hubert의 도마뱀 발생표 기준 31-34단계까지 자라 있었어요. 비교하자면 같은 도마뱀과의 유럽장지뱀 Podarcis muralis는 25-29단계에서 알을 낳아요. 그러니까 Zootoca vivipara의 난생 개체군은 다른 도마뱀보다 발생이 훨씬 진행된 상태에서 알을 내놓는 거예요. 논문은 알품기를 연장하는 이 난생 개체군이 지금의 난태생 개체군으로 이어지는 조상 단계에 해당할 가능성이 높다고 적어요. 다만 같은 문장에서 이와 다르게 보는 선행 연구(Surget-Groba et al. 2006)도 함께 가리키고 있어서, 확정된 결론은 아니에요.
연구가 이뤄진 곳
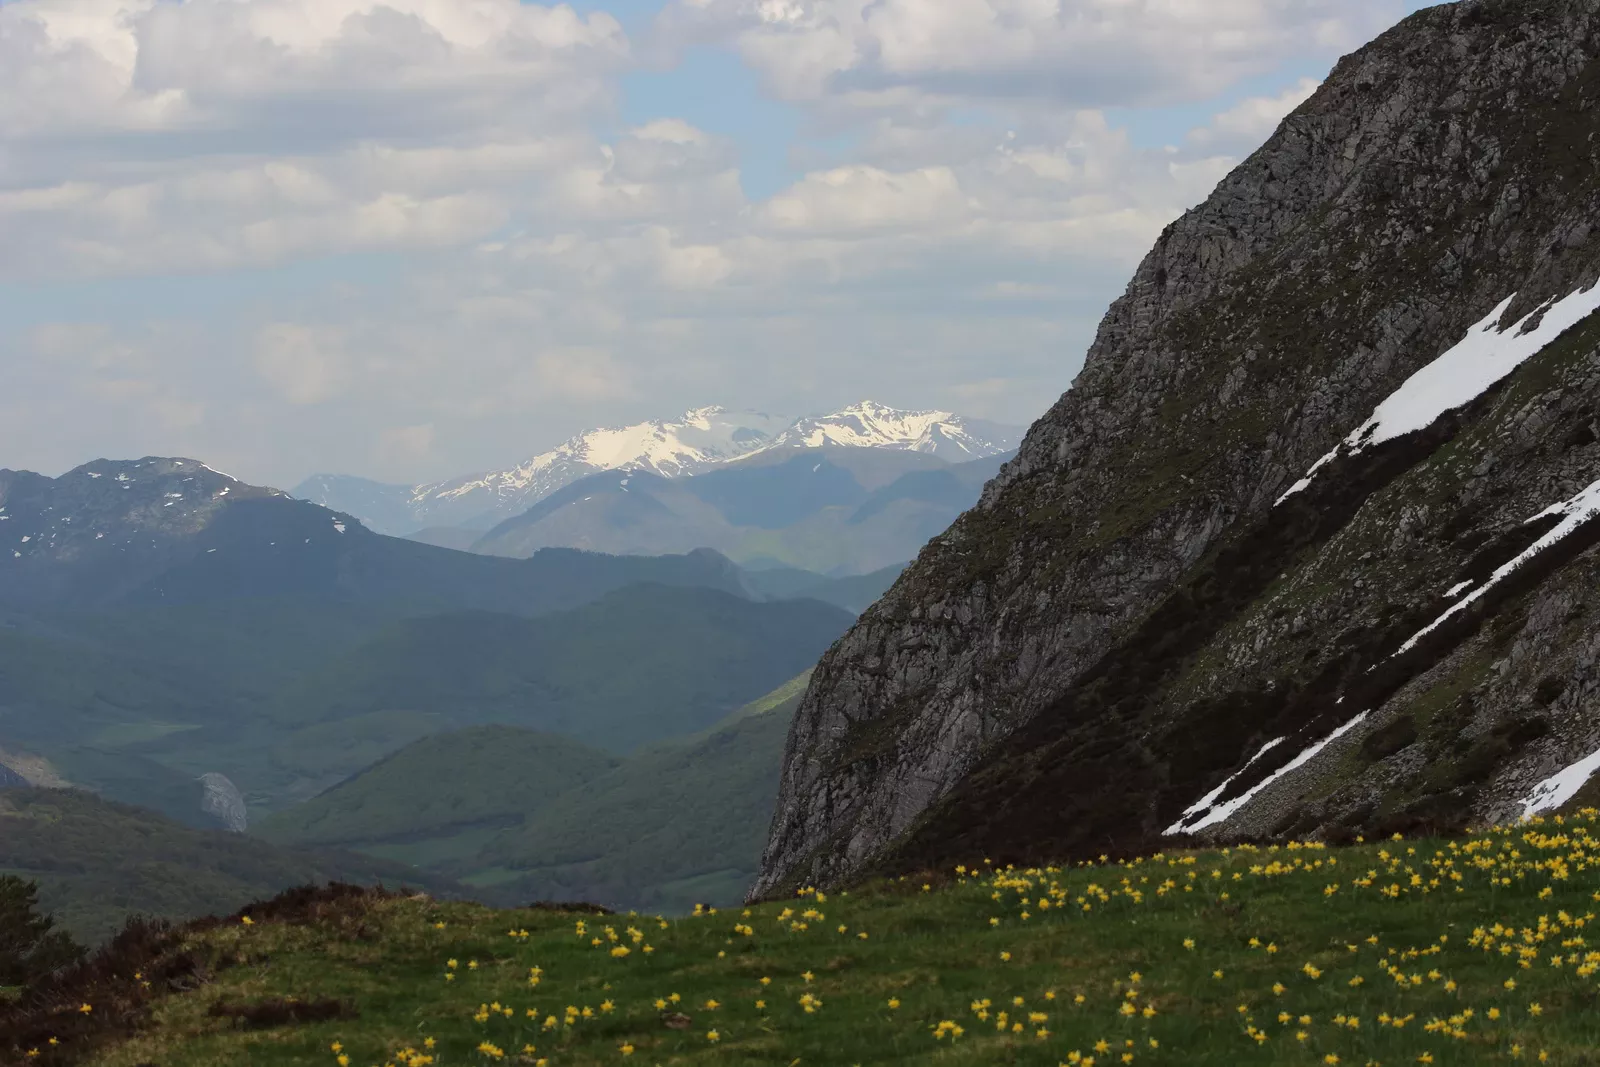
연구진은 스페인 북부 레온주의 라스 세냘레스(Las Señales)라는 고지대에서 임신한 암컷을 손으로 잡아 오비에도 대학교 실험실로 옮겼어요. 해발 1650-1750미터의 산지예요. 이 개체군의 성체는 주둥이부터 항문까지의 길이(SVL)가 40-64밀리미터로 아주 작고, 이탄습지·초지·습한 황무지 같은 축축한 곳에 살아요. 암컷은 1년에 한 번 번식하고 한 배에 알을 2-11개 낳아요(이 연구에서 쓴 표본은 한 배에 3-9개였어요). 배란은 대개 6월 초, 산란은 대개 7월이에요.
난태생 진화를 설명하는 두 가지 가설
본론에 들어가기 전에 이 논문이 저울에 올린 두 가설을 먼저 정리할게요. 둘 다 “왜 어떤 파충류는 알을 낳지 않고 몸속에서 다 키우게 됐을까”에 대한 답이에요.
첫 번째는 한랭 기후 가설(cold-climate hypothesis)이에요. 추운 곳에서는 땅속 둥지가 너무 차가워서 배아 발생이 한없이 느려져요. 그런데 어미는 햇볕을 쬐며 체온을 올릴 수 있으니, 어미 몸속은 땅속보다 훨씬 따뜻해요. 그러니 알을 몸에 오래 갖고 있을수록 배아가 빨리 자라고, 겨울이 오기 전에 부화를 마칠 수 있어요. 핵심은 “속도”예요. 알품기가 발생을 가속하기 때문에 유리하다는 설명이에요.
두 번째는 모체 조작 가설(maternal manipulation hypothesis)이에요. 어미가 알을 품는 이유는 발생을 빨리 끝내기 위해서가 아니라, 배아에게 가장 알맞은 온도 환경을 직접 만들어 주기 위해서라는 설명이에요. 온도는 부화 속도만 바꾸는 게 아니라 새끼의 몸 크기, 몸 비율, 운동 능력 같은 표현형까지 바꿔요. 어미가 자기 체온을 조절하면 그 표현형을 좋은 쪽으로 “조작”할 수 있다는 거예요. 핵심은 “품질”이에요.
| 구분 | 한랭 기후 가설 | 모체 조작 가설 |
|---|---|---|
| 대표 문헌 | Packard et al. 1977, Tinkle & Gibbons 1977, Shine 1985 | Shine 1995, Webb et al. 2006 |
| 알품기가 주는 이득 | 발생 속도 가속 | 부화체 표현형 개선 |
| 어미 체온의 역할 | 땅보다 따뜻하게 유지 | 배아에 최적인 값으로 맞춤 |
| 유리해지는 조건 | 둥지가 차가운 추운 기후 | 추운 기후가 아니어도 성립(열대 파충류에서도 검정된 적 있어요) |
| 어미에게 기대되는 행동 | 알을 둥지보다 따뜻하게 유지, 체온을 낮출 이유는 없음 | 배아에 맞는 특정 체온(반드시 높지는 않음) |
두 가설은 얼핏 보면 같은 말처럼 들려요. 실제로 한랭 기후 가설을 모체 조작 가설의 특수한 경우로 볼 수 있다는 견해도 있어요. 하지만 한 가지 조건에서는 서로 어긋날 수 있어요. 만약 배아 표현형에 가장 좋은 온도가 어미가 낼 수 있는 체온보다 낮다면, 모체 조작 가설을 따르는 어미는 일부러 서늘하게 지낼 거예요. 그러면 발생이 느려지니까 한랭 기후 가설이 말하는 “가속”이라는 이득이 그만큼 깎여요. 어긋남이 실제로 얼마나 큰지를 수치로 재 보는 것이 이 논문의 목표예요.
실험 1: 임신한 암컷은 정말 서늘한 곳을 고를까
연구진은 먼저 번식기에 야외에서 활동 중인 성체 143마리를 잡아 총배설강 체온을 쟀어요. 항문 안쪽에 빠르게 읽히는 온도계를 넣어 몸속 온도를 재는 방식이에요. 개체를 처음 발견한 지점의 지면 온도와, 그 지점에서 10센티미터 위의 공기 온도도 함께 기록했어요.
그다음에는 실험실에서 온도 구배(thermal gradient)를 만들었어요. 사육장 한쪽 끝에 60와트 백열등을 달아 놓으면 등 아래는 뜨겁고 반대쪽 끝은 서늘해져요. 이 안에 도마뱀을 넣어 두면 각자 원하는 자리로 이동해요. 한 시간 반 뒤에 체온을 재면, 그 개체가 “고른” 온도를 알 수 있어요. 구배의 서늘한 쪽 지면은 평균 22.7도, 따뜻한 쪽 지면은 평균 37.3도였어요. 자리 경쟁이 생기지 않도록 한 번에 7마리를 넘기지 않았고, 개체당 한 번만 측정했어요.
이 방법의 요점은 야외의 제약을 걷어 낸 조건에서 잰다는 것이에요. 야외에서 도마뱀이 서늘한 데 있다면, 그건 원해서일 수도 있지만 그늘밖에 없었거나 포식자가 무서웠기 때문일 수도 있어요. 실험실 구배에는 포식자도 없고 먹이 걱정도 없으니, 여기서 고른 온도는 그런 제약이 줄어든 조건에서의 선택을 보여줘요. 다만 한 시간 반 뒤에 한 번 잰 값이라, 제약이 전혀 없는 순수한 선호값이라고 단정할 수는 없어요. 논문은 구배에 포식·먹이 비용이 없었다는 점을 근거로, 임신한 암컷의 낮은 체온이 배가 무거워 잘 못 움직인 결과는 아니라고 봐요. 구배 안에서는 몇 센티미터만 옮기면 되니까요.
결과: 임신한 암컷만 눈에 띄게 서늘했어요
아래는 논문 Table 1의 값을 옮긴 거예요. 값은 평균 ± 표준편차, 괄호 안은 개체 수예요.
| 측정 항목 | 수컷 | 비임신 암컷 | 임신 암컷 |
|---|---|---|---|
| 온도 구배에서 고른 체온 | 34.25 ± 0.96 °C (58) | 33.94 ± 1.12 °C (97) | 32.33 ± 1.27 °C (64) |
| 야외 활동 중 체온 | 29.77 ± 2.70 °C (39) | 29.20 ± 2.89 °C (41) | 27.91 ± 3.33 °C (63) |
| 발견 지점의 지면 온도 | 24.39 ± 3.60 °C (31) | 23.97 ± 3.57 °C (40) | 22.31 ± 4.14 °C (56) |
| 발견 지점의 공기 온도 | 20.48 ± 3.15 °C (30) | 20.13 ± 2.77 °C (39) | 19.29 ± 3.83 °C (56) |
통계 결과는 이렇게 나왔어요.
| 비교 | 검정 | 결과 |
|---|---|---|
| 구배에서 고른 체온 | 일원 분산분석 | F(2,216) = 54.449, P < 0.001 |
| 야외 체온 | 일원 분산분석 | F(2,140) = 4.977, P < 0.01 |
| 야외 체온(지면·기온 보정) | 공분산분석 | F(2,119) = 3.823, P < 0.05 |
| 지면 온도 | 일원 분산분석 | F(2,124) = 3.712, P < 0.05 |
| 공기 온도 | 일원 분산분석 | F(2,122) = 1.439, P > 0.05 (차이 없음) |
읽어야 할 대목이 세 가지예요.
첫째, 임신한 암컷은 수컷·비임신 암컷보다 약 1.7도 낮은 체온을 골랐어요. 수컷과 비임신 암컷은 서로 거의 같았고요(둘을 합치면 34.05 ± 1.07도예요). 임신한 암컷 집단만 선택 체온이 낮았던 거예요. 다만 이건 집단 사이의 비교예요. 같은 암컷을 임신 전과 임신 중에 각각 재서 변화를 추적한 게 아니라, 그때그때 잡은 개체를 상태별로 나눠 비교한 값이에요.
둘째, 야외 체온은 실험실에서 고른 온도보다 전반적으로 훨씬 낮았어요. 수컷조차 야외에서는 29.8도밖에 안 됐는데 구배에서는 34.3도를 골랐어요. 논문은 이 차이를 두고 해발 1600미터대 고지대라는 환경 자체가 정확한 체온 조절을 어렵게 만든다고 해석해요. 원하는 온도를 알고 있어도 그 온도를 낼 수 있는 자리가 늘 있는 건 아니라는 뜻이에요.
셋째, 임신한 암컷은 더 서늘한 지면 위에서 발견됐어요. 공기 온도는 세 집단 사이에 차이가 없었는데 지면 온도만 달랐어요. 논문은 이를 임신한 암컷이 평소라면 활동하지 않을 서늘한 조건에서도 나와서, 조금이라도 체온을 올려 배아 발생을 진전시키려 한 결과일 수 있다고 봐요.
자연 둥지는 얼마나 차가울까
어미의 체온이 의미를 가지려면 비교 대상이 필요해요. 알이 땅속 둥지에 있었다면 몇 도였을까요? 연구진은 2006년과 2007년 5월부터 10월까지 소형 온도 기록계(Tidbit v2)를 실제 둥지 2곳과 둥지가 될 만한 유사 지점 3곳에 묻어 두고 한 시간에 한 번씩 온도를 기록했어요. 논문 표기로 알품기 기간(5-6월)과 몸 밖 부화 기간(7-9월)을 모두 포함하는 기간이에요.
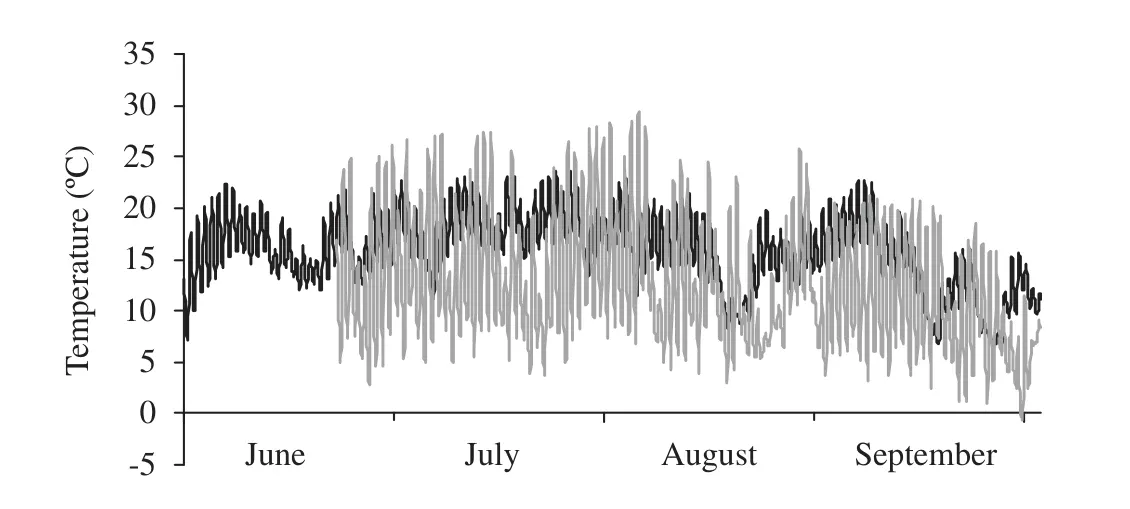
그래프에서 바로 보이는 게 두 가지예요. 하나는 낮았다는 것이고, 다른 하나는 심하게 출렁였다는 것이에요. 실제 둥지 두 곳의 평균 온도는 16.74 ± 2.68도, 14.98 ± 3.44도였어요. 하루 안에서도 0도 근처까지 떨어졌다가 25도를 넘기는 날이 흔했어요. 임신한 암컷이 “낮은” 체온으로 고른 32.3도와 비교하면, 자연 둥지의 평균은 15도 넘게 낮아요.
여기서 실험 설계의 배경이 설명돼요. 연구진이 고른 다섯 가지 부화 온도 중 21도와 25도는 실제 둥지에서 관측되는 범위 안에 있어요. 29도와 32도는 둥지 범위보다 높지만 어미 몸속에서는 초기 발생 동안 자주 도달하는 온도예요. 그리고 34도는 임신한 암컷이 고른 온도보다 높고, 대략 수컷과 비임신 암컷이 고른 온도예요.
실험 2: 다섯 가지 온도에서 알을 길렀어요
산란이 끝난 알은 하나씩 무게를 재고 부화 조건에 배정했어요. 각 알은 50밀리리터 뚜껑 달린 플라스틱 용기에 하나씩 넣었고, 습도 조건은 모든 온도에서 동일하게 맞췄어요(버미큘라이트 1그램당 증류수 2그램). 부화 온도는 21도·25도·29도·32도·34도의 다섯 가지 항온 조건이었어요. 여기에 더해 알 4개를 17도에서 부화시켰는데, 이건 온도와 부화 기간의 관계를 나타내는 곡선을 저온 쪽으로 확장해 더 잘 맞추기 위한 조치였어요.
한 배에서 나온 알 하나는 배아 발생 단계를 확인하려고 갈랐고, 나머지는 각 온도군에 되도록 고르게 나눴어요. 한 배의 알 수가 적어서 어미별 효과를 따로 분석할 만큼 균형 잡힌 설계를 만들지는 못했어요. 논문은 어미 개체 수가 많고 이 종은 한 배 안에서도 아비가 여럿인 경우가 흔하다는 점(다부성)을 들어 그 영향이 제한적일 것으로 봤어요. 다만 다부성은 같은 배 새끼들의 아비 쪽 유전적 유사성을 낮출 뿐이고, 어미에게서 오는 유전 효과나 알의 질처럼 한 배가 공유하는 요인까지 없애 주지는 않아요. 어미별 효과가 완전히 배제된 설계는 아니라는 뜻이에요.
부화한 새끼는 곧바로 무게를 재고, 수컷의 반음경을 밖으로 뒤집어 내는 방법으로 성별을 확인한 다음, 이미지 분석 소프트웨어로 머리·복부·앞다리·뒷다리·꼬리 길이를 쟀어요. 오른쪽 앞다리의 둘째·셋째·넷째 발가락 길이도 따로 쟀고요(안쪽부터 바깥쪽으로 번호를 매긴 거예요).
왜 하필 이 부위들일까요? 각 부위가 실제 생존과 번식에 연결되기 때문이에요. 이 부분은 이 논문이 직접 확인한 게 아니라 선행 연구를 근거로 삼은 대목이라 구분해서 적어 둘게요.
| 측정 부위 | 왜 중요한가 | 근거 |
|---|---|---|
| 머리 길이 | 무는 힘에 영향을 주고, 무는 힘은 먹이 선택을 좌우함 | Herrel et al. 2001 |
| 머리 크기 | 수컷의 싸움·붙잡기 능력을 높여 번식 성공에 유리 | Gvoždík & Van Damme 2003 |
| 복부 길이 | 암컷이 한 배에 담을 수 있는 알의 수·부피와 연결됨 | Braña 1996 |
| 앞다리 길이 | 이동 능력에 영향을 주고, 도망·먹이 확보와 연결됨 | Braña 2003 |
| 꼬리 길이 | 수컷의 꼬리가 길수록 낳게 한 새끼 수가 많음 | Hoffmann & Henle 2006 |
결과 1: 온도가 올라갈수록 부화가 빨라졌어요, 그런데 끝에서 멈췄어요
부화 기간은 온도에 따라 아주 뚜렷하게 달라졌어요(크러스컬-월리스 검정: H(5,168) = 157.58, P < 0.001). 관계는 직선이 아니라 음의 지수 함수였어요.
\[ Y = 10.996 + e^{\,8.313 – 0.234X} \]
여기서 \(Y\)는 부화 기간(일), \(X\)는 부화 온도(°C)예요. 이 식은 관측값을 대단히 잘 설명해요(\(R^2 = 0.998\)).
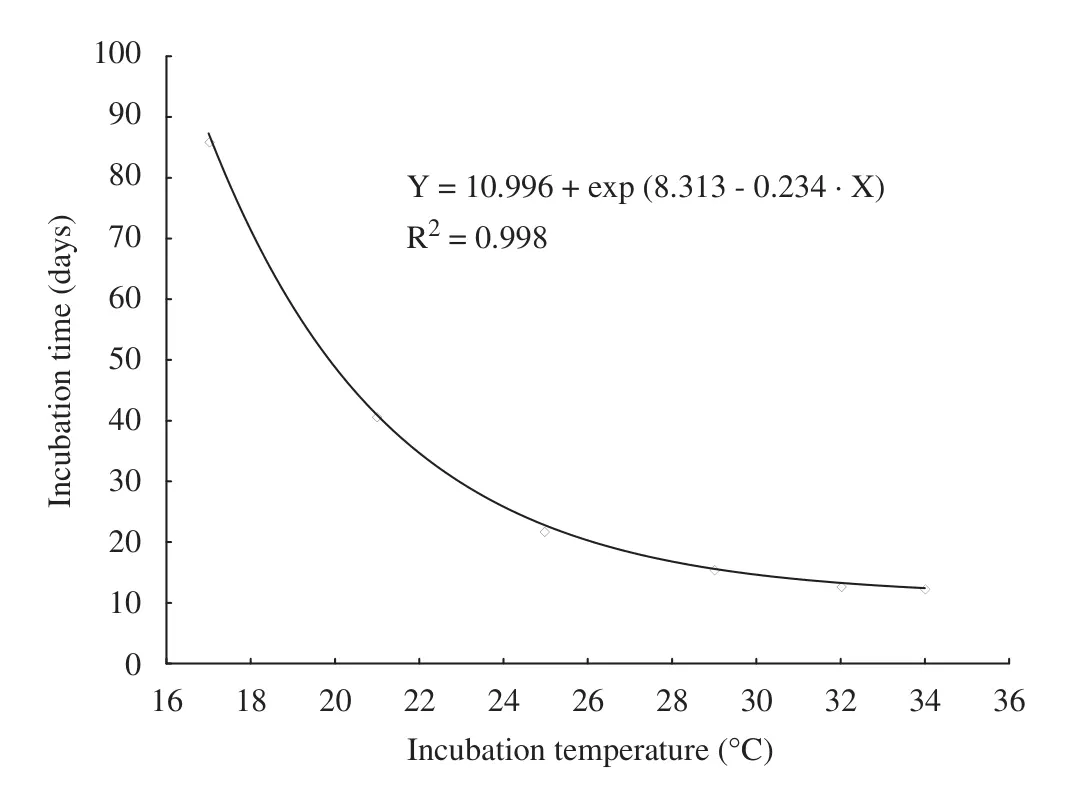
논문 본문이 수치로 밝힌 부화 기간은 아래와 같아요. 25도와 29도는 본문에 값이 적혀 있지 않아서, 위 식에 온도를 넣어 계산한 값을 따로 표시해 뒀어요.
| 부화 온도 | 부화 기간 |
|---|---|
| 17 °C | 86.00 ± 2.83일 (실측) |
| 21 °C | 40.51 ± 2.21일 (실측) |
| 25 °C | 약 23일 (위 식으로 계산한 값) |
| 29 °C | 약 16일 (위 식으로 계산한 값) |
| 32 °C | 12.57 ± 0.65일 (실측) |
| 34 °C | 12.39 ± 0.50일 (실측) |
이 표에서 가장 중요한 줄은 마지막 두 줄이에요. 17도에서 21도로 4도를 올리자 부화 기간이 86일에서 40일로 절반 이하가 됐어요. 그런데 32도에서 34도로 올렸을 때는 12.57일에서 12.39일로, 0.2일도 안 되는 차이밖에 없었어요. 통계적으로도 두 온도의 부화 기간은 차이가 없었어요.
전문적으로 말하면 온도-발생속도 관계의 비선형성이고, 쉽게 말하면 높은 온도 구간에서는 온도를 더 올려도 얻는 게 거의 없다는 뜻이에요. 이 사실이 뒤에서 두 가설을 화해시키는 열쇠가 돼요.
결과 2: 34도의 대가는 컸어요
34도에서 부화까지 살아남은 알은 58퍼센트(N = 31)였어요. 나머지 네 온도의 평균 생존율은 93퍼센트(N = 156)였고요. 다섯 온도군 전체를 놓고 본 생존율 차이는 통계적으로 뚜렷했어요(카이제곱 검정: χ² = 42.203, 자유도 4, P < 0.001). 이 검정은 다섯 온도를 한꺼번에 비교한 것이라 34도와 나머지 온도를 하나씩 따로 검정한 값은 아니에요. 게다가 논문은 나머지 네 온도를 하나로 묶은 평균만 밝혔기 때문에, 그 네 온도끼리 생존율이 어떻게 갈렸는지는 알 수 없어요. 말할 수 있는 것은 34도군이 나머지를 합친 값보다 크게 낮았다는 것까지예요.
죽은 배아의 상태가 특히 눈에 띄어요. 논문은 죽은 배아 대부분이 부화 직전까지 발달한 상태였고, 머리에 기형이 있었으며, 알을 깨고 나오지 못했다고 적어요. 부화 실패의 직접적인 원인을 따로 검증한 것은 아니지만, 발생이 초기에 멈춘 게 아니라 끝까지 자라 놓고 마지막 문턱에서 걸렸다는 점은 분명해요.
한 가지 짚어 둘 게 있어요. 논문은 이 서술에 온도군을 붙이지 않았어요. 위 비율을 개수로 되돌려 보면 34도군에서 죽은 알이 13개 안팎이고, 나머지 네 온도군을 합친 사망도 11개 안팎이에요. 즉 죽은 배아의 절반 남짓만 34도군에서 나왔어요. 그러니 “머리에 기형이 있는 만삭 배아”가 34도에서만 나타난 양상인지는 논문에 적힌 것만으로는 알 수 없어요.
| 부화 온도 | 부화 생존율 |
|---|---|
| 21 °C, 25 °C, 29 °C, 32 °C | 평균 93% (N = 156) |
| 34 °C | 58% (N = 31) |
정리하면 이래요. 속도 쪽에서는 34도가 32도보다 나은 게 없었어요(12.39일 대 12.57일, 통계적으로 차이 없음). 생존 쪽에서는 34도군의 42퍼센트가 부화하지 못했고, 이는 나머지 네 온도를 합친 실패율(약 7퍼센트)보다 훨씬 높아요. 두 비교의 기준이 서로 다르다는 점은 짚어 둘게요. 부화 기간은 32도와 34도를 짝지어 비교한 값이고, 생존율은 34도와 나머지 네 온도를 묶은 값을 비교한 것이에요. 그래도 온도를 34도까지 올려서 얻은 속도 이득이 없었다는 사실만큼은 32도와의 직접 비교로 확인돼요.
결과 3: 살아남은 새끼도 몸이 달랐어요
생존한 새끼들의 몸을 재 보니, 온도는 여기에도 흔적을 남겼어요.
가장 뚜렷한 건 머리 길이였어요. 34도에서 나온 새끼는 다른 모든 온도에서 나온 새끼보다 머리가 눈에 띄게 짧았어요. 그리고 25도와 32도에서 나온 새끼가 머리가 가장 길었어요.
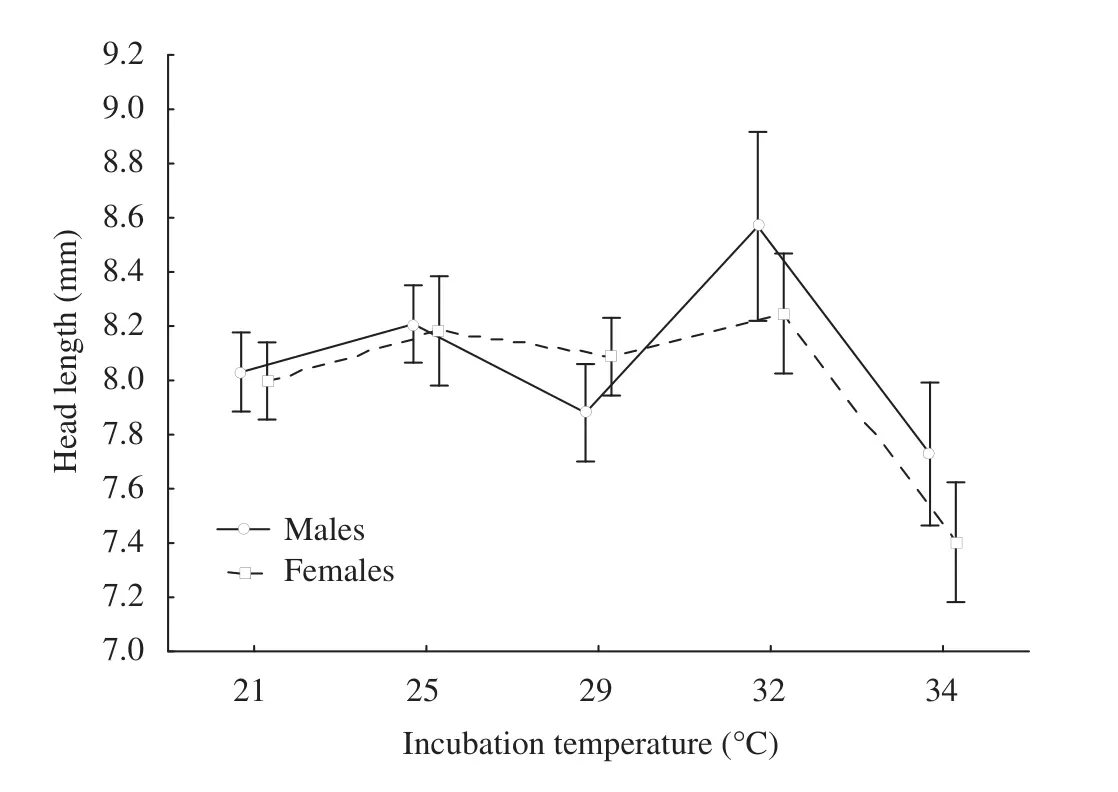
아래는 논문 Table 2의 주요 값을 옮겨 정리한 거예요. 값은 평균 ± 표준편차이고, M은 수컷, F는 암컷이에요. F값은 이원 공분산분석의 결과인데, 체중·꼬리·앞다리·뒷다리는 주둥이-항문 길이를, 머리와 복부는 알 무게를 공변량으로 넣었어요(머리와 복부는 그 자체가 주둥이-항문 길이의 일부라서 그래요).
| 형질 | 성별 | 21 °C | 25 °C | 29 °C | 32 °C | 34 °C | 성별 효과 | 온도 효과 | 상호작용 |
|---|---|---|---|---|---|---|---|---|---|
| 체중 (g) | M | 0.219 ± 0.02 | 0.221 ± 0.01 | 0.216 ± 0.02 | 0.234 ± 0.02 | 0.231 ± 0.03 | F(1,142) = 14.00** (M > F) | F(4,142) = 1.38 | F(4,142) = 1.13 |
| F | 0.223 ± 0.01 | 0.230 ± 0.03 | 0.226 ± 0.02 | 0.222 ± 0.02 | 0.228 ± 0.04 | ||||
| 머리 (mm) | M | 8.00 ± 0.29 | 8.23 ± 0.39 | 7.88 ± 0.36 | 8.59 ± 0.37 | 7.70 ± 0.20 | F(1,142) = 2.23 | F(4,149) = 11.82*** / (25,32) > (21,29) > 34 | F(4,142) = 2.31 |
| F | 7.99 ± 0.33 | 8.22 ± 0.50 | 8.12 ± 0.44 | 8.21 ± 0.31 | 7.38 ± 0.40 | ||||
| 복부 (mm) | M | 12.15 ± 0.64 | 12.86 ± 0.98 | 12.12 ± 0.57 | 13.15 ± 1.18 | 13.76 ± 1.70 | F(1,142) = 90.15*** (F > M) | F(4,142) = 14.10*** / 21 < (25,29) < (32,34) | F(4,142) = 2.40, p = 0.053 |
| F | 13.40 ± 0.62 | 14.12 ± 1.17 | 13.98 ± 0.90 | 14.98 ± 0.55 | 14.30 ± 0.55 | ||||
| 앞다리 (mm) | M | 3.83 ± 0.32 | 4.04 ± 0.52 | 3.74 ± 0.37 | 3.99 ± 0.29 | 3.56 ± 0.52 | F(1,139) = 7.77** (M > F) | F(4,139) = 4.24** / (21,34) < (25,29,32) | F(4,139) = 1.25 |
| F | 3.73 ± 0.34 | 3.97 ± 0.38 | 4.10 ± 0.43 | 4.18 ± 0.29 | 3.57 ± 0.38 | ||||
| 뒷다리 (mm) | M | 4.83 ± 0.55 | 5.06 ± 0.37 | 4.90 ± 0.40 | 5.18 ± 0.32 | 4.82 ± 0.64 | F(1,142) = 18.94*** (M > F) | F(4,142) = 1.85 | F(4,142) = 0.84 |
| F | 4.88 ± 0.38 | 4.86 ± 0.46 | 4.85 ± 0.46 | 5.03 ± 0.20 | 4.60 ± 0.41 | ||||
| 꼬리 (mm) | M | 23.59 ± 2.70 | 25.81 ± 1.49 | 25.60 ± 2.27 | 26.35 ± 2.39 | 26.27 ± 2.41 | F(1,141) = 28.50*** (M > F) | F(4,141) = 6.74*** / 21 < (25,29,32,34) | F(4,141) = 0.46 |
| F | 23.05 ± 1.03 | 25.37 ± 1.54 | 25.02 ± 1.22 | 25.89 ± 1.50 | 24.20 ± 2.48 |
별표는 유의 수준이에요(** P < 0.01, *** P < 0.001). 온도 효과 칸의 괄호는 사후 검정에서 서로 차이가 없었던 온도끼리 묶은 거예요.
표에서 머리 길이의 온도 효과만 분모 자유도가 149이고, 같은 분석의 성별 효과와 상호작용은 142예요. 논문 원문을 다시 확인해 보니 Table 2에 실제로 F(4,149)로 인쇄돼 있어서 그대로 옮겼어요. 같은 이원 공분산분석에서 오차 자유도가 달라질 이유는 없으니 원문의 인쇄 오류로 보이고, 142가 맞을 가능성이 커요.
표를 정리하면 이렇게 읽혀요.
- 머리: 34도가 가장 짧았어요. 죽은 배아에서도 머리 기형이 보고됐지만, 논문은 그 기형을 “머리가 짧아진 것”이라고 특정하지 않았어요. 두 관찰이 같은 현상인지는 이 논문만으로 알 수 없어요.
- 앞다리: 가장 낮은 21도와 가장 높은 34도 양쪽에서 짧았어요. 양 극단이 모두 불리한 형질이에요.
- 복부: 높은 온도군에서 대체로 길었어요. 사후 검정에서는 21도, 25·29도, 32·34도의 순서로 묶였어요.
- 꼬리: 21도에서만 짧았고 나머지 온도는 서로 비슷했어요.
- 체중과 뒷다리: 온도의 영향이 통계적으로 확인되지 않았어요.
성별 차이도 뚜렷했어요. 몸길이를 보정하면 수컷이 더 무겁고 꼬리와 다리가 길었으며, 암컷은 복부가 길었어요. 발가락에서는 셋째와 넷째 발가락이 수컷에서 더 길었고(F(1,121) = 6.854, P < 0.01 및 F(1,121) = 6.228, P < 0.05), 둘째 발가락에서는 성별 차이가 없었어요(F(1,121) = 1.623, P > 0.05).
한 가지 헷갈리기 쉬운 대목을 짚어 둘게요. 이 논문은 온도가 새끼의 몸을 어떻게 바꾸는지를 본 것이지, 온도가 성별 자체를 정하는지는 다루지 않았어요. 부화 온도가 성별을 정하는 게코 이야기는 부화 온도로 성별이 정해지는 도마뱀붙이 이야기에 따로 있어요.
세부 사항이 하나 더 있어요. 34도 집단에서는 복부 길이의 암수 차이가 개별 비교에서 유의하지 않았어요. 다른 네 온도에서는 암컷 복부가 뚜렷하게 길었고요. 다만 성별과 온도의 상호작용 자체는 P = 0.053으로 통상적인 기준에서 유의하지 않았어요. 그러니 높은 온도가 성차를 바꿨다고 결론 내릴 수는 없고, 판단을 미뤄 둘 관찰로 남겨요.
그래서 두 가설은 충돌했을까
이제 처음 질문으로 돌아가요. 결과를 순서대로 이어 보면 이렇게 돼요.
모체 조작 가설 쪽 증거부터 볼게요. 임신한 암컷은 수컷·비임신 암컷보다 낮은 32.3도를 골랐어요. 그리고 실험에서 34도, 그러니까 대략 수컷과 비임신 암컷이 고르는 온도에서는 알의 42퍼센트가 부화하지 못했고, 살아남은 새끼는 머리와 앞다리가 짧았어요. 임신하지 않은 개체들이 고른 체온을 임신한 암컷도 그대로 골랐다면 배아가 34도 부근에 더 자주 노출됐을 가능성이 있어요. 즉 어미의 체온 하향 조정은 배아에게 해로운 온도를 피하는 행동으로 설명할 수 있어요. 모체 조작 가설의 예측과 맞아떨어지는 결과예요.
그럼 한랭 기후 가설은 깨졌을까요? 언뜻 보면 그래요. 어미가 체온을 낮추면 발생이 느려지니까, “알품기가 발생을 가속한다”는 주장과 어긋나 보여요. 그런데 여기서 앞의 두 가지 수치가 결정적이에요.
첫째, 체온을 낮춘 대가가 거의 없었어요. 32도와 34도의 부화 기간 차이는 0.2일 미만이고 통계적으로도 차이가 없었어요. 온도-발생속도 곡선이 고온 구간에서 이미 평평해졌기 때문이에요. 산란 뒤 항온 조건의 결과만 놓고 보면, 34도에서 32도로 낮아져도 부화 기간의 차이는 사실상 없었어요. 논문은 어미 몸속에서도 온도 의존성이 비슷하게 작동한다고 가정하고 이 논리를 폈어요.
둘째, 32도는 여전히 압도적으로 따뜻해요. 어미가 고른 32도 부근에서는 항온 조건에서 약 13일 만에 부화했고, 실험에서 가장 낮았던 17도에서는 86일이 걸렸어요. 자연 둥지의 평균은 15-17도였지만 온도가 크게 출렁이는 변온 환경이라, 위의 항온 실험식에 둥지 평균값을 넣어 실제 부화 기간을 계산할 수는 없어요. 그래도 어미 몸속이 둥지 평균보다 15도 넘게 따뜻하다는 사실 자체는 분명하고, 논문도 이 온도 차이를 근거로 알품기가 발생을 크게 앞당긴다고 봐요.
이 논문에 나온 온도들을 한 줄에 세워 보면 관계가 한눈에 들어와요.
임신한 암컷이 “낮춘” 32.3도는 자연 둥지 평균보다 15도 넘게 높은 온도예요. 반대로 산란 뒤 항온 실험에서 32도와 34도의 부화 기간 차이는 거의 없었어요. 논문은 어미 몸속에서도 온도 의존성이 비슷하다고 가정해, 32.3도와 34.1도 사이의 1.7도가 발생 속도에 미치는 영향도 작을 것으로 해석했어요. 어미가 포기한 것은 아주 작고, 지켜 낸 것은 아주 크다는 뜻이에요.
정리하면 이래요.
| 질문 | 답 |
|---|---|
| 임신한 암컷은 다른 성체보다 서늘한 체온을 골랐나 | 골랐어요 (수컷·비임신 암컷 34.1도, 임신 암컷 32.3도) |
| 그 온도가 배아에게 더 나은가 | 34도군의 부화 생존율이 나머지 네 온도를 합친 값보다 크게 낮았고, 살아남은 새끼도 머리·앞다리가 짧았어요 |
| 체온을 낮춰 발생이 느려졌나 | 산란 뒤 항온 실험에서는 32도와 34도의 부화 기간 차이가 없었어요. 어미 몸속에서도 같은지는 논문의 가정이에요 |
| 알품기가 여전히 발생을 가속하나 | 논문의 해석으로는 그래요. 어미가 고른 32도 부근은 자연 둥지 평균(15-17도)보다 훨씬 따뜻해요. 다만 체내 발생 속도를 직접 잰 것은 아니에요 |
| 두 가설은 양립 가능한가 | 이 연구 모델에서는 양립 가능해요 |
두 가설이 충돌할 것 같았던 이유는 “체온을 낮추면 발생이 느려진다”는 직관 때문이었어요. 그런데 실제 곡선이 고온 구간에서 평평했기 때문에, 어미는 속도를 거의 잃지 않으면서 품질을 챙길 수 있었어요. 이 논문의 결론이에요.
논문은 부수적으로 다른 가설 하나도 검토했어요. Shine이 2004년에 제안한 변형인데, 알품기의 진짜 이득은 온도를 높이는 게 아니라 온도를 안정시키는 것이라는 견해예요. 실제로 자연 둥지의 온도는 어미 체온보다 훨씬 심하게 출렁였어요. 그런데 이 논문의 데이터에서는 임신한 암컷과 임신하지 않은 암컷 사이에 체온 조절의 정밀도 차이가 없었어요. 야외에서도, 실험실 구배에서도요. 오히려 임신한 암컷은 더 서늘한 지면에서도 활동해서 활동 시 최저 체온이 더 낮았어요. 게다가 도마뱀이 활동하며 체온을 조절하는 시간은 하루의 3분의 1 정도뿐이고 나머지 시간에는 땅 온도에 가깝게 지내니, 실제로는 하루 안 변동이 오히려 더 클 수도 있어요.
이 논문이 확인하지 못한 것
이 논문을 읽을 때 함께 알고 있어야 할 한계가 몇 가지 있어요. 논문 자체가 밝히고 있는 것들이에요.
첫째, 부화 실험은 알을 낳은 뒤에 했어요. 어미 몸속(자궁 내) 조건에서 온도를 바꿔 가며 실험한 게 아니라, 산란된 알을 인큐베이터에 넣어 실험했어요. 연구진은 몸속 조건에서도 같은 효과가 나타난다고 가정하고 논의를 전개해요. 이 가정을 뒷받침하는 근거로 같은 도마뱀과의 유럽장지뱀 연구를 드는데, 유럽장지뱀은 발생이 덜 진행된 상태에서 알을 낳기 때문에 그 종의 “부화 초기”가 Zootoca vivipara의 “알품기 시기”에 대응한다는 논리예요. 합리적인 추론이지만 직접 검증은 아니에요.
둘째, 34도 조건의 알이 31개로 적어요. 생존율 차이 자체는 통계적으로 뚜렷하지만, 형태 측정값은 살아남은 개체에서만 얻은 값이에요. 가장 약한 배아가 이미 걸러진 집단이라는 점을 감안해야 해요.
셋째, 부화 이후를 추적하지 않았어요. 머리가 짧고 앞다리가 짧으면 불리할 것이라는 판단은 다른 연구들이 밝힌 형질-적합도 관계에서 빌려 온 거예요. 이 논문이 실제로 새끼를 길러 생존율이나 번식 성공을 잰 것은 아니에요.
넷째, 항온 실험이에요. 다섯 가지 온도는 모두 일정하게 유지된 온도였어요. 그런데 실제 둥지 온도는 하루 안에서도 0도 근처와 25도 위를 오갈 만큼 크게 출렁여요. 평균이 같아도 변동 폭이 다르면 결과가 달라질 수 있다는 것은 다른 파충류 연구에서 반복적으로 지적돼 온 문제예요. 평균을 똑같이 맞춰 놓고 “출렁임”만 떼어내 본 실험은 평균은 같은데 온도가 출렁였다면 어떻게 되는지 다룬 글에 정리해 뒀어요.
다섯째, 개체군 하나예요. 스페인 북부 고지대의 난생 개체군 한 곳을 대상으로 한 연구예요. 이 종의 다른 난생 개체군이나 난태생 개체군에 그대로 적용된다고 볼 수는 없어요.
크레를 키우는 우리에게: 우리가 왜 알을 꺼내 인큐베이터에 넣는가
이제 크레 이야기를 할 차례예요. 미리 말해 두면, 이 논문에서 크레 사육에 바로 적용할 온도 숫자는 나오지 않아요. 32도든 34도든 도마뱀과 고지대 개체군의 값이고, 크레에 그대로 옮기면 위험해요. 대신 다른 것을 얻을 수 있어요.
크레는 이 도마뱀과 정반대 위치에 있어요
Zootoca vivipara의 난생 개체군은 발생이 상당히 진행된 배아를 품고 있다가 알을 낳아요. 발생의 앞부분을 어미가 자기 체온으로 관리하는 셈이에요. 크레는 어떨까요? 크레 배아의 생식소 발생을 추적한 연구에 따르면, 크레는 알을 낳은 뒤 5일째가 되어서야 생식소 능선이 처음 생겨요. 나중에 난소나 정소가 될 세포 덩어리가 그때 만들어지기 시작한다는 뜻이에요. 알을 낳는 시점에는 그 구조조차 아직 없어요. 이 이야기는 크레 배아의 생식소가 언제 난소와 정소로 갈라지는지 다룬 글에서 더 자세히 볼 수 있어요.
| 비교 항목 | Zootoca vivipara (난생 개체군) | 크레 |
|---|---|---|
| 산란 시점에 확인된 발생 지표 | 배아 전체가 Dufaure-Hubert 발생표 31-34단계 | 생식소 능선이 아직 없음(산란 5일 뒤 형성) |
| 산란 전 체내 발생 | 같은 과의 다른 도마뱀보다 뚜렷하게 길어요 | 있지만 기간을 재 놓은 자료는 찾기 어려워요 |
| 몸 밖 부화 기간 | 12-86일(온도에 따라) | 대략 50-65일 보고(24-27도 조건) |
| 산란 뒤 온도를 정하는 존재 | 둥지가 놓인 자리의 땅 | 우리 |
두 종의 첫 줄은 성격이 다른 지표라는 점을 짚어 둘게요. 왼쪽은 배아 전체의 발생 단계이고, 오른쪽은 특정 기관 하나가 언제 나타나는지예요. 그래서 이 줄만으로 크레의 배아가 Zootoca vivipara보다 정확히 얼마나 덜 자란 상태에서 나오는지는 말할 수 없어요.
크레도 산란 전에 체내에서 배아 발생이 진행되지만, 산란 뒤의 긴 발생 기간은 사육자가 마련한 상자 안에서 지나가요. Zootoca vivipara의 어미가 하는 일, 그러니까 “배아가 겪을 온도를 고르는 일”을 크레에서는 그 기간 동안 사람이 대신하고 있는 셈이에요.
이 사진의 아이가 태어난 이야기는 우리 집 막내가 태어난 날의 다이어리에 있어요.
이 논문이 남기는 세 가지 시사점
하나, “빨리 부화하는 온도”와 “좋은 온도”는 다를 수 있어요. 이 연구에서 34도는 부화 기간이 32도와 거의 같았는데도 알의 42퍼센트가 부화하지 못했어요. 온도를 올려서 얻는 속도 이득은 어느 지점부터 급격히 줄어드는데, 위험은 그렇지 않았어요. 크레에서 정확히 어느 온도가 그 지점인지는 아직 답이 없지만, “며칠 만에 나왔다”를 성공 지표로 삼으면 안 된다는 방향은 분명해요. 크레의 최적 부화 온도 근거가 지금 어디까지 와 있는지는 24도가 정말 최적인지 따져 본 글에 정리해 뒀어요.
둘, 부화에 성공했다고 끝이 아니에요. 34도에서 살아남은 새끼들도 머리와 앞다리가 짧았어요. 알이 깨졌다는 사실만으로는 그 온도가 괜찮았다고 말할 수 없어요. 부화 이후에도 체중, 몸길이, 첫 탈피, 먹이 반응, 성장 속도를 기록해 두면 온도 설정의 결과를 훨씬 넓게 볼 수 있어요. 높은 부화 온도가 새끼의 더위 견디는 능력까지 바꾸는지 따져 본 게코 실험은 더운 둥지에서 나온 새끼가 더위에 강해지는지 본 글에 있어요.
셋, 죽은 배아가 어느 시점에 멈췄는지가 정보예요. 이 연구에서 죽은 배아는 대부분 부화 직전까지 발달한 상태였고 머리에 기형이 있었어요. 부화하지 못한 알을 정리할 때 겉모습과 배아의 발달 단계를 기록해 두면 반복되는 양상을 발견하는 데 도움이 될 수 있어요. 이 기록만으로 원인을 진단하기보다는, 다음 상담이나 사육 기록을 위한 단서로 남겨 주세요.
마무리
이 논문은 크레 논문도 아니고 게코 논문도 아니에요. 스페인 북부 산지에 사는 작은 도마뱀 이야기예요. 그런데 이 도마뱀의 어미가 하는 일은 우리가 인큐베이터 앞에서 하는 일과 닮은 면이 있어요. 배아가 겪을 온도에 영향을 준다는 것이죠.
차이가 있다면, 이 도마뱀의 어미는 자연선택을 거치며 형성된 것으로 해석되는 체온 선택 행동을 보이고, 우리는 아직 크레에 대해 그런 기준을 갖고 있지 않다는 점이에요. 임신한 암컷이 다른 개체보다 약 1.7도 낮은 체온을 고르는 그 미세한 차이에 어떤 계산이 들어 있는지 보고 나면, 인큐베이터 다이얼을 돌리는 손이 조금 더 조심스러워져요.
참고 자료
- 원 논문: Rodríguez-Díaz, T., González, F., Ji, X., Braña, F. (2010). Effects of incubation temperature on hatchling phenotypes in an oviparous lizard with prolonged egg retention: are the two main hypotheses on the evolution of viviparity compatible? Zoology 113(1), 33-38. https://doi.org/10.1016/j.zool.2009.05.001
- 본문에 인용한 선행 연구는 위 논문의 참고문헌 목록에 실린 것들이에요: Braña (1996), Braña (2003), Braña & Ji (2007), Dufaure & Hubert (1961), Gvoždík & Van Damme (2003), Herrel et al. (2001), Hoffmann & Henle (2006), Ji & Braña (1999), Laloi et al. (2004), Packard et al. (1977), Shine (1985, 1995, 2004), Surget-Groba et al. (2001, 2006), Tinkle & Gibbons (1977), Webb et al. (2006).
- 크레 배아의 생식소 발생 자료는 Rams-Pociecha, Mizia & Piprek, Biology 2024, 13(1), 7(2023년 12월 22일 온라인 게재) 논문을 근거로 했어요.
- 크레의 부화 기간(24-27도에서 50-65일) 자료는 Vingert & Gonobobleva (2025) 연구를 근거로 했어요.
사진 출처: Zootoca vivipara 성체 사진은 Charles J. Sharp, CC BY-SA 4.0. 세 마리가 함께 있는 사진은 Apinanaivot, CC0. 분포도는 SanoAK: Alexander Kürthy, CC BY-SA 3.0. 유럽장지뱀 사진은 Charles J. Sharp, CC BY-SA 4.0. 라스 세냘레스 풍경 사진은 Arrebatacapas, CC BY-SA 4.0.