크레는 소리의 높낮이를 어떻게 구분할까: 청각유모세포의 두 가지 조율 비밀
크레는 귀가 잘 안 보여서 그런지 “청각이 있기는 한가?” 싶을 때가 있는데요, 사실 도마뱀붙이류는 소리에 상당히 예민한 동물이에요. 미국 위스콘신대 신경과학과의 로버트 페티플레이스(Robert Fettiplace)와 매릴린 뵈르그(Maryline Beurg)가 크레(Correlophus ciliatus)의 청각 기관을 살아있는 상태로 통째로 분리해서, 세포의 전기 반응과 섬모다발 움직임을 기록하고 고음역의 기계적 공명을 계산한 논문이 있어요. 학술지 Hearing Research 457권(2025년 3월)에 실렸어요. 이 글은 학술지에서 리뷰 아티클로 분류돼 있는데, 같은 연구팀이 2022년 PNAS에 발표한 데이터를 다시 정리하면서 새로 측정한 섬모다발 움직임 결과를 함께 실은 형태예요. 아래 인용한 그림 중 일부도 그 2022년 논문에서 가져와 다듬은 것이에요.
이 논문은 사육 실용성보다는 “크레가 세상을 어떻게 감각하는가”를 들여다보는 순수 기초과학 논문이에요. 전기생리학이라는, 반려인에게는 낯선 분야를 다루지만 원리를 하나씩 풀어보면 꽤 흥미로운 이야기라 정리해봤어요.
크레의 귀 속에는 달팽이관 대신 “파필라”가 있어요
사람을 포함한 포유류는 달팽이 모양으로 돌돌 말린 달팽이관(cochlea)으로 소리를 듣지만, 도마뱀류는 이 구조가 소용돌이 모양이 아니라 길쭉한 판 모양이에요. 이걸 청각유두, 영어로는 파필라(auditory papilla)라고 불러요. 크레의 파필라는 길이가 1.6mm 정도밖에 안 되는 아주 작은 조직인데, 연구팀은 이 조직을 마취한 개체에게서 통째로 분리해 살아있는 상태로 현미경 아래 고정한 다음, 그 안에 있는 개별 청각유모세포(hair cell, 소리를 감지하는 감각세포)에 가느다란 유리 전극을 꽂아 전기 신호를 직접 기록했어요. 실험에 쓰인 개체는 위스콘신대 동물실험윤리위원회의 승인을 받은 절차로 다뤄졌어요. 한 가지 기억해 둘 점이 있는데, 논문은 방법 절에서 섬모다발을 또렷하게 찍기 위해 여기 실은 측정을 효소(프로테아제) 처리로 섬모다발 위를 덮고 있던 막과 살렛을 걷어낸 뒤에 했다고 밝혀요. 그래서 살아있는 개체에서는 살렛의 무게와 이웃 섬모다발끼리의 협응 때문에 값이 달라질 수 있다고 논문도 밝혀요.
파필라 표면에는 청각유모세포마다 섬모다발(hair bundle)이라는 털다발이 솟아 있어요. 섬모다발이 소리(정확히는 진동)에 밀려 기울면 그 안의 기계전기변환 채널(mechanotransduction channel, 물리적 자극을 전기 신호로 바꾸는 통로)이 열리면서 전기 신호가 만들어져요. 쉽게 말하면 섬모다발은 소리의 파동을 붙잡는 아주 작은 더듬이이고, 그 뿌리에 있는 문(채널)이 흔들림의 세기에 맞춰 열렸다 닫혔다 하면서 “지금 소리가 왔다”는 신호를 만들어내는 거예요.
흥미로운 부분은 이 파필라를 덮고 있는 구조가 위치마다 다르다는 점이에요. 파필라의 기저부(base) 쪽 3분의 1은 개막(tectorial membrane, 감각세포 위를 덮는 젤라틴질 막)이 끊김 없이 이어진 “개막 커튼(tectorial curtain)”으로 덮여 있고, 첨단부(apex) 쪽 3분의 2는 개막이 잘게 조각난 살렛(sallet)이라는 구조물이 섬모다발 한 줄씩을 따로따로 덮고 있어요. 아래 그림 A에서 노란색으로 그려진 부분이 개막 커튼, 주황색 알갱이들이 살렛이에요.
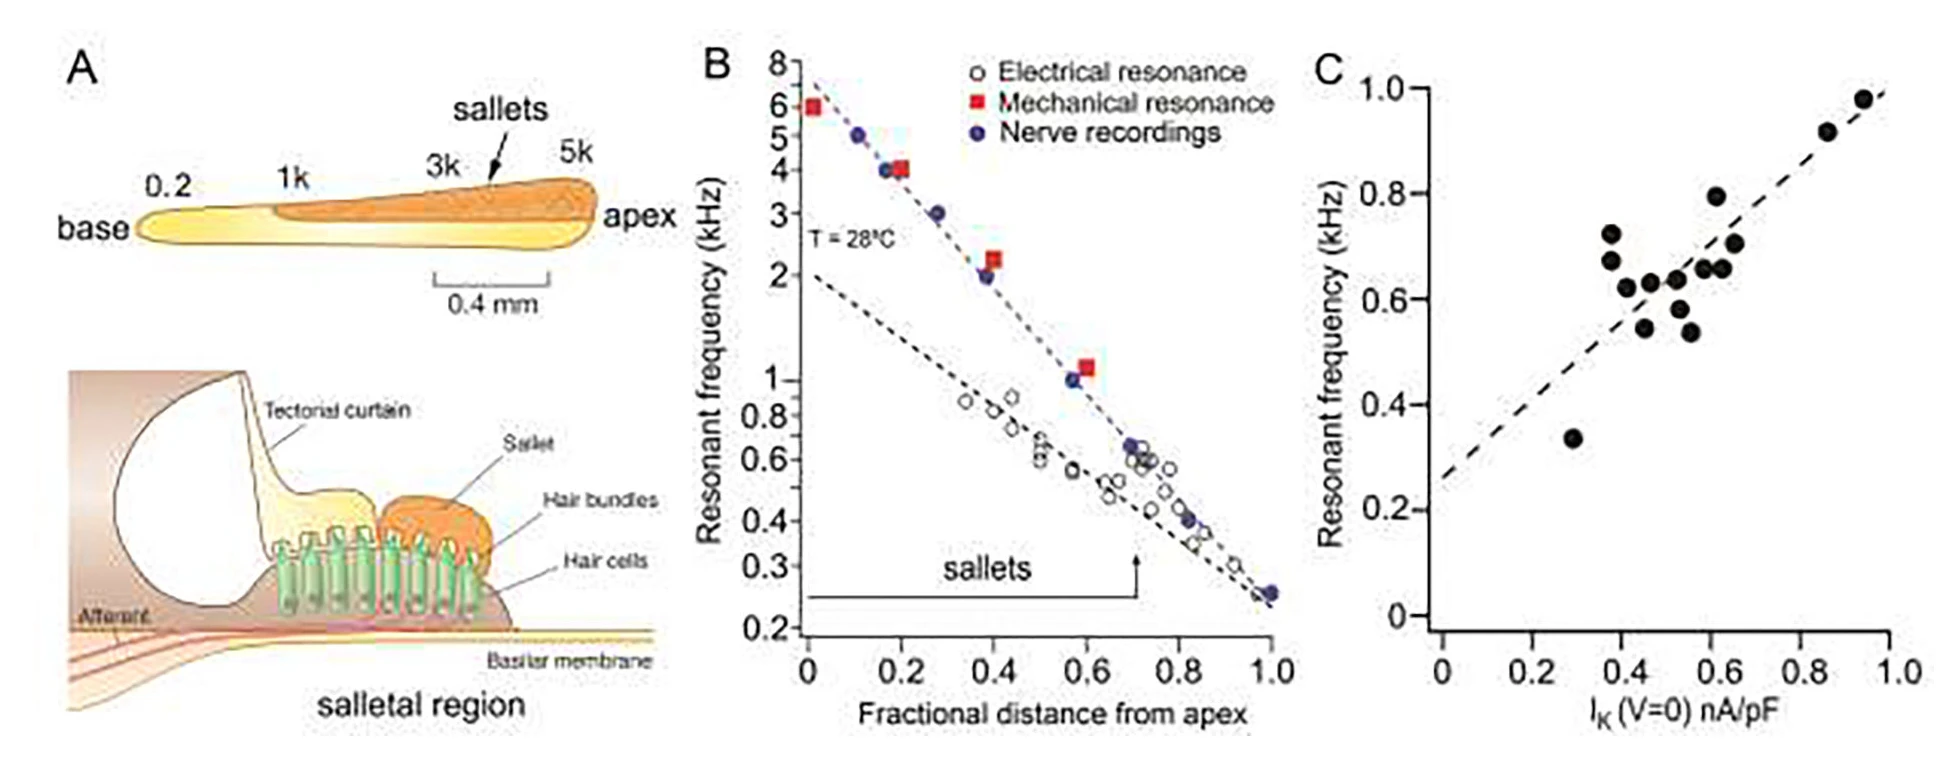
그림 1B를 보면 재미있는 사실이 하나 보여요. 파필라의 기저부에서 첨단부로 갈수록 담당하는 주파수가 낮은 음(0.2kHz 근처)에서 높은 음(5-6kHz)으로 올라가요. 사람의 달팽이관은 반대로 입구(기저부) 쪽이 높은 음, 안쪽(첨단부) 깊은 곳이 낮은 음을 담당하거든요. 크레를 포함한 게코류는 이 배치가 거꾸로예요. 왜 이렇게 진화했는지는 아직 명확하지 않지만, 이전에 토케이게코(Tokay gecko)에서도 같은 역전 배치가 보고된 적이 있어서, 게코류 전반의 특징으로 보여요.
낮은 음은 전기 신호로, 높은 음은 진동으로 조율되는 것으로 보여요
이 논문의 핵심은, 크레의 청각유모세포가 낮은 음과 높은 음을 서로 다른 두 가지 원리로 조율한다는 설명을 내놓은 데 있어요. 저음역에서는 세포 자체의 전기적 공명이 두드러지고, 고음역에서는 섬모다발과 살렛의 기계적 공명이 제안돼요. 다만 아래에서 보듯 두 방식이 맡는 구간이 칼같이 나뉘지는 않고 상당 부분 겹쳐요.
저음역: 세포 자체가 특정 주파수로 “울리는” 전기적 공명
연구팀은 파필라 길이의 약 70퍼센트 구간에서 전기적 공명(electrical resonance, 전기적 동조라고도 해요)이라는 현상을 확인했어요. 기저부의 개막 커튼 영역만이 아니라 살렛 영역의 상당 부분까지 여기에 들어가요. 전문적으로 설명하면, 이건 세포막에 있는 칼슘 활성화 칼륨 채널(BK 채널이라고 불러요, 세포 안의 칼슘 농도가 오르면 열리는 칼륨 통로)이 전압 의존성 칼슘 채널과 짝을 이뤄서, 전기 자극을 주면 세포막 전압이 특정 주파수로 몇 차례 진동하다가 잦아드는 현상이에요. 실제로 BK 채널을 막는 TEA 1mM이나 전압 의존성 칼슘채널을 막는 CoCl2 2mM을 넣으면 이 진동이 사라져요. 진동수는 세포마다 다른데, BK 채널을 더 많이 가진 세포일수록(그림 1C처럼 칼륨전류가 클수록) 더 높은 주파수로 울려요(그림 1B와 1C의 주파수는 28°C 기준으로 보정한 값이에요). 다만 살렛이 덮고 있는 구간에서 전기적 공명이 실제로 어떤 몫을 하는지는 논문도 아직 불분명하다고 밝혀요.
쉽게 말하면 세포 하나하나가 자기만의 “소리굽쇠”를 내장하고 있는 셈이에요. 소리굽쇠를 두드리면 크기와 재질에 따라 정해진 음으로 “웅” 하고 울리다가 잦아들죠. 여기서는 물리적인 진동이 아니라 칼슘과 칼륨 이온이 세포막을 들락거리는 전기적인 되먹임(feedback) 회로가 특정 박자로 오르내리는 건데, 이 회로에 들어있는 칼륨 채널의 개수가 많고 적음에 따라 세포마다 “타고난 음”이 달라지는 거예요. 채널을 더 많이 가진 세포는 더 빨리 진동해서 높은 음을, 적게 가진 세포는 천천히 진동해서 낮은 음을 담당해요. 이건 사실 새로운 발견은 아니고, 거북이의 청각유모세포에서도 비슷한 전기적 조율이 알려져 있었어요. 다만 거북이는 이 방식만으로 1kHz 정도까지밖에 소리를 못 듣는데, 크레는 여기에 더해 두 번째 조율 방식을 하나 더 갖고 있어요.
고음역: 섬모다발과 살렛이 함께 흔들리는 기계적 공명
파필라의 첨단부로 갈수록(살렛 영역의 고음역), 연구팀은 섬모다발의 생김새가 체계적으로 바뀌는 걸 확인했어요. 살렛이 덮는 구간에서 섬모다발의 키는 기저부 쪽 끝 16마이크로미터에서 첨단부 쪽 5.5마이크로미터까지 3배 가까이 짧아지고, 반대로 섬모(부동섬모, stereocilia) 개수는 28개에서 48개까지 늘어나요.
섬모다발의 뻣뻣한 정도(강성, stiffness)는 섬모 개수에 비례하고 키의 제곱에 반비례하는데, 논문은 이 두 변화로부터 기저부 대비 첨단부의 강성이 13배 커진다고 봤어요. 위에 적은 양 끝 값만 그대로 대입하면 14배 남짓이 나오니까, 13배는 끝값 두 개가 아니라 위치별 측정 분포 전체를 반영한 추정치로 읽는 게 맞아요. 실제로 가느다란 유리섬유로 섬모다발을 밀어 강성을 직접 재보니 0.04-0.5mN/m 범위(약 12배 차이)가 나와서 이 추정과 맞아떨어졌어요.
여기에 살렛 하나가 덮는 섬모다발의 개수도 기저부 약 2개에서 첨단부 5개로 늘어나요. 한 살렛에 매달린 섬모다발이 많을수록 그 살렛을 옆으로 밀기가 어려워지니 강성이 2.5배 더해지고, 13배와 2.5배를 곱해서 살렛과 섬모다발이 합쳐진 “복합체”의 강성이 기저부 대비 첨단부에서 32배까지 벌어진다는 게 논문의 계산이에요.
전문적으로 설명하면, 이렇게 강성(스프링 역할)과 살렛의 질량(추 역할)이 위치마다 다르게 조합되면서, 각 위치마다 고유한 기계적 공명주파수가 만들어져요. 스프링 끝에 추를 매단 계의 공명주파수를 구하는 것과 같은 식이에요.
\[ F_R = \frac{1}{2\pi}\sqrt{\frac{K_S}{M_S}} \]
여기서 \(K_S\)는 방금 구한 복합체의 강성이고, \(M_S\)는 살렛의 질량(계산값 \(1.9 \times 10^{-12}\) kg)이에요. 위치별 값을 이 식에 넣어보니 1kHz에서 6kHz 사이의 대역이 나왔어요. 다만 이건 측정한 강성과 계산한 질량을 모델에 넣어 얻은 예측값이고, 각 위치의 기계적 공명을 직접 측정해서 확인한 값은 아니에요. 그림 1B에서 빨간 사각형이 “예측된 기계적 공명”으로 표시된 것도 그 때문이에요.
쉽게 말하면 실로폰이나 목금을 떠올리면 돼요. 실로폰의 막대는 짧고 단단할수록 높은 음을, 길고 물렁할수록 낮은 음을 내죠. 크레의 파필라에서는 “막대” 역할을 섬모다발이, 그 위에 얹힌 “추”의 역할을 살렛이 맡고 있어요. 첨단부로 갈수록 섬모다발은 더 짧고 뻣뻣해지는데(막대가 짧아지는 것과 비슷해요) 그 위의 살렛은 오히려 더 커져서 담당하는 섬모다발 개수가 늘어나요. 이 둘의 조합이 위치마다 달라지면서, 파필라 전체가 마치 건반이 나란히 배열된 것처럼 저음부터 고음까지 각자 다른 음을 맡게 되는 거예요.
정리하면 아래 표와 같아요.
| 파필라 위치 | 덮개 구조 | 담당 조율 방식 | 대략의 주파수 대역 |
|---|---|---|---|
| 기저부(base) 쪽 3분의 1, 개막 커튼 영역 | 끊김 없는 개막(개막 커튼) | 전기적 공명(BK 채널), 세포 기록으로 직접 확인됨 | 약 0.2-1kHz (낮은 음) |
| 첨단부(apex) 방향 3분의 2, 살렛 영역 | 조각난 개막인 살렛 | 섬모다발-살렛 복합체의 기계적 공명(모델 예측). 이 영역의 상당 부분에서는 전기적 공명도 함께 측정됨 | 모델상 약 1-6kHz (높은 음) |
전기 자극을 주면 섬모다발이 저절로 흔들려요
연구팀은 여기서 한 가지를 더 실험했어요. 파필라 전체에 50Hz에서 800Hz 사이의 사인파 형태의 미세한 전류를 흘려보내면서 살렛 영역의 섬모다발이 어떻게 움직이는지 카메라로 관찰한 거예요. 그랬더니 섬모다발이 흔들리긴 하는데, 흥미롭게도 자극한 전류의 주파수보다 2배 빠르게 흔들리는 경우가 잦았어요(50Hz로 자극하면 섬모다발은 100Hz로 흔들리는 식이에요). 움직임의 크기는 10나노미터에서 100나노미터가 넘는 범위였고, 자극 주파수를 올릴수록 작아져서 500Hz 부근에서 절반으로 줄었어요.
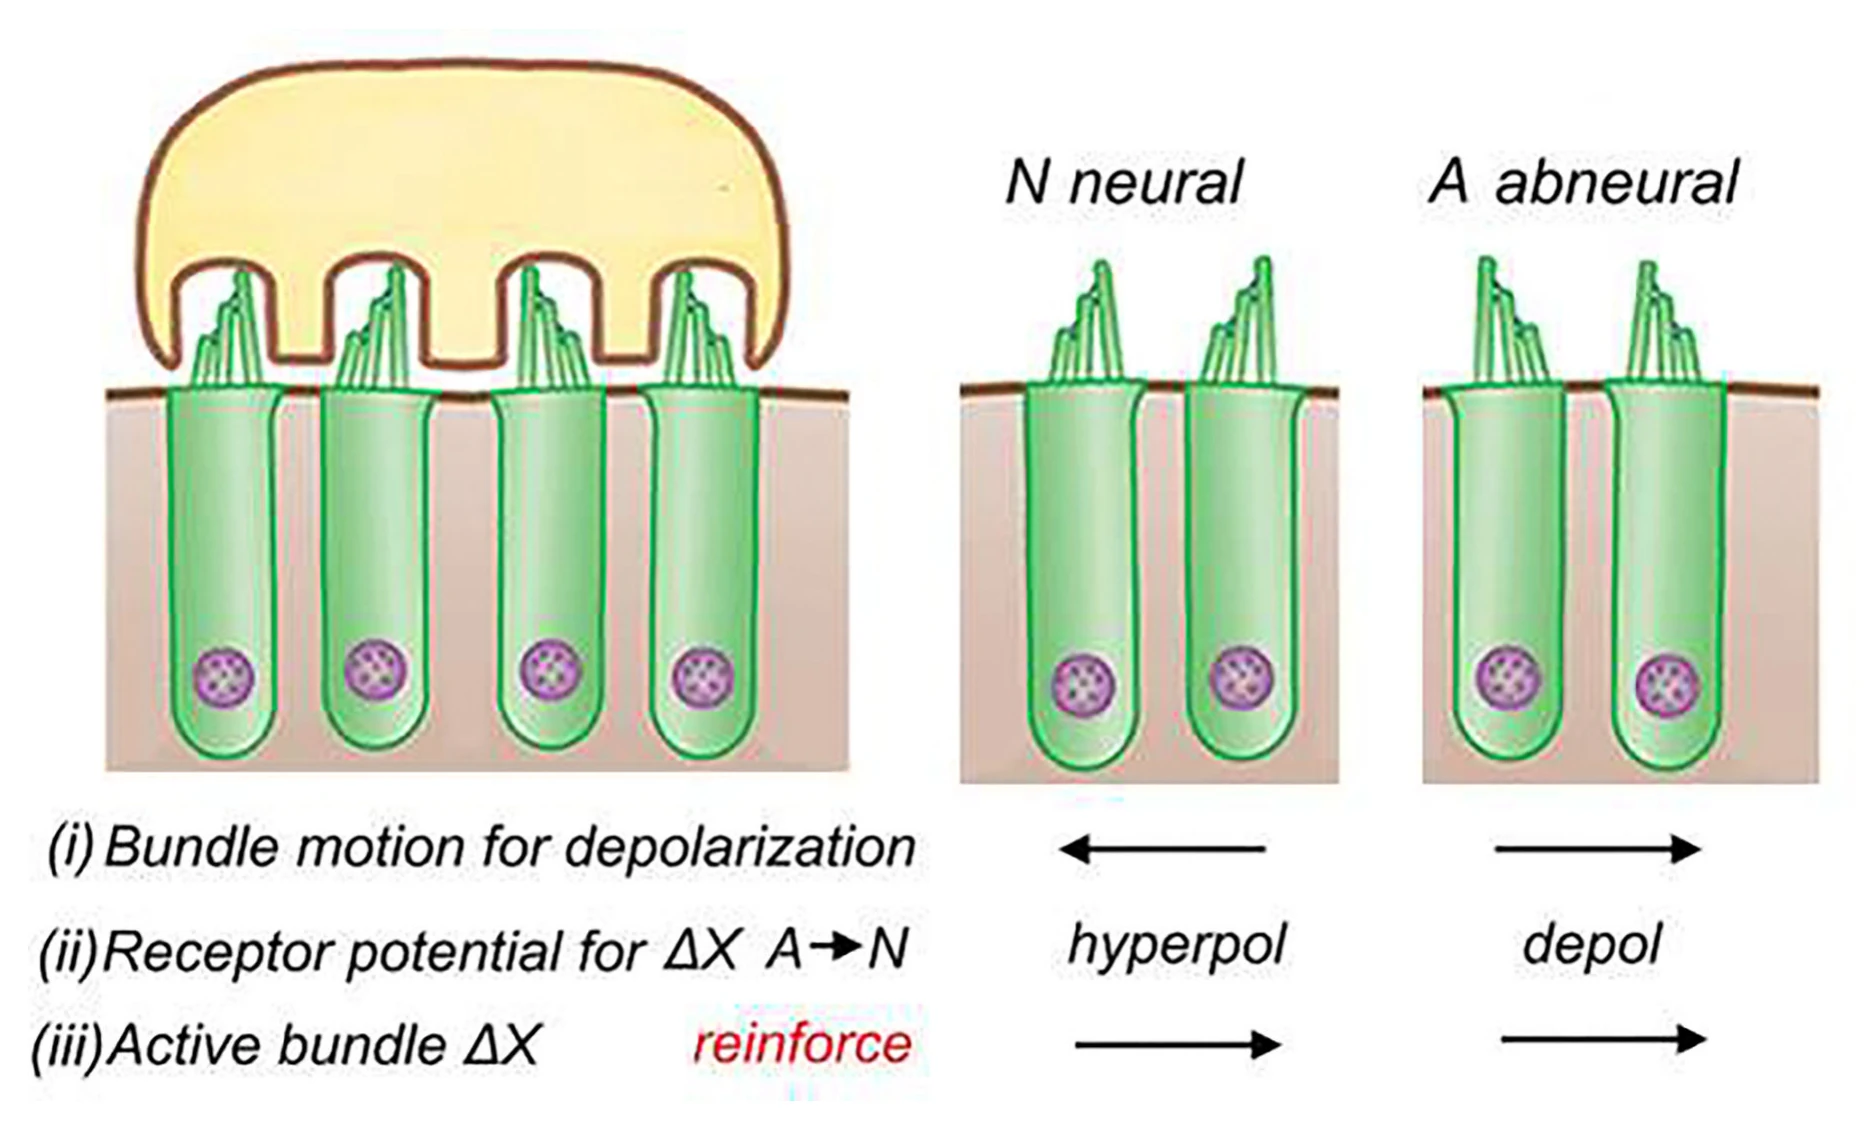
전문적으로 설명하면, 원래 살렛 하나가 덮고 있던 자리에는 서로 반대 방향을 향한 섬모다발들이 함께 모여 있어요(신경 쪽을 향한 것과 그 반대인 무신경 쪽을 향한 것). 이 실험은 살렛을 걷어낸 상태에서 했지만 그 아래 섬모다발의 배열은 그대로예요. 파필라를 가로질러 흐르는 전류는 한 줄에 늘어선 세포들을 똑같이 탈분극(depolarize, 세포막 안쪽이 평소보다 덜 음전위가 되는 상태)시키는데, 같은 탈분극에 대해 방향이 반대인 두 무리의 섬모다발은 서로 반대쪽으로 움직여요. 한 무리가 어떤 위상을 만들면 다른 무리는 정반대 위상을 만드는 셈이에요.
여기에 더해 연구팀은 이 움직임이 세포 하나에 갇혀 있지 않다는 것도 확인했어요. 섬모다발 뿌리 쪽 세포 윗면(망상판)에 지름 2마이크로미터짜리 실리카 구슬을 얹어 놓았더니, 구슬도 섬모다발 끝과 비슷한 크기로, 역시 2배 주파수로 움직였거든요. 구슬은 10마이크로미터쯤 되는 섬모다발보다 훨씬 낮은 자리에 있어서 주변 물이 흐르는 것만으로는 그렇게 움직이기 어려우니, 세포 윗면과 망상판 자체가 기울면서 이웃한 세포들이 기계적으로 연결돼 있다는 뜻이에요. 논문은 이 2배 주파수 반응이 방향이 반대인 두 무리의 빠른 전기-기계 반응으로 설명이 된다고 보는데, 두 반응이 정확히 어떤 식으로 결합해서 2배 성분을 만드는지까지는 밝히지 않았어요. 반대 위상인 두 움직임을 그냥 더하기만 하면 서로 상쇄될 뿐이라 어딘가에 비선형적인 결합이 있어야 하는데, 그 부분은 열려 있는 셈이에요. 논문 스스로도 기전은 아직 모르고 더 연구가 필요하다고 적어 놓았어요.
쉽게 말하면 이런 그림이에요. 세포들의 윗면이 하나의 판처럼 이어져 있고, 그 판 위에 서로 등을 맞대고 선 두 무리의 더듬이가 박혀 있어요. 전류가 흐르면 두 무리가 서로 반대쪽으로 밀고, 판이 기울면서 그 힘이 옆 세포까지 전해져요. 확실한 건 여기까지고, 이 구조에서 흔들림의 횟수가 왜 2배가 되는지는 아직 설명이 붙지 않은 상태예요.
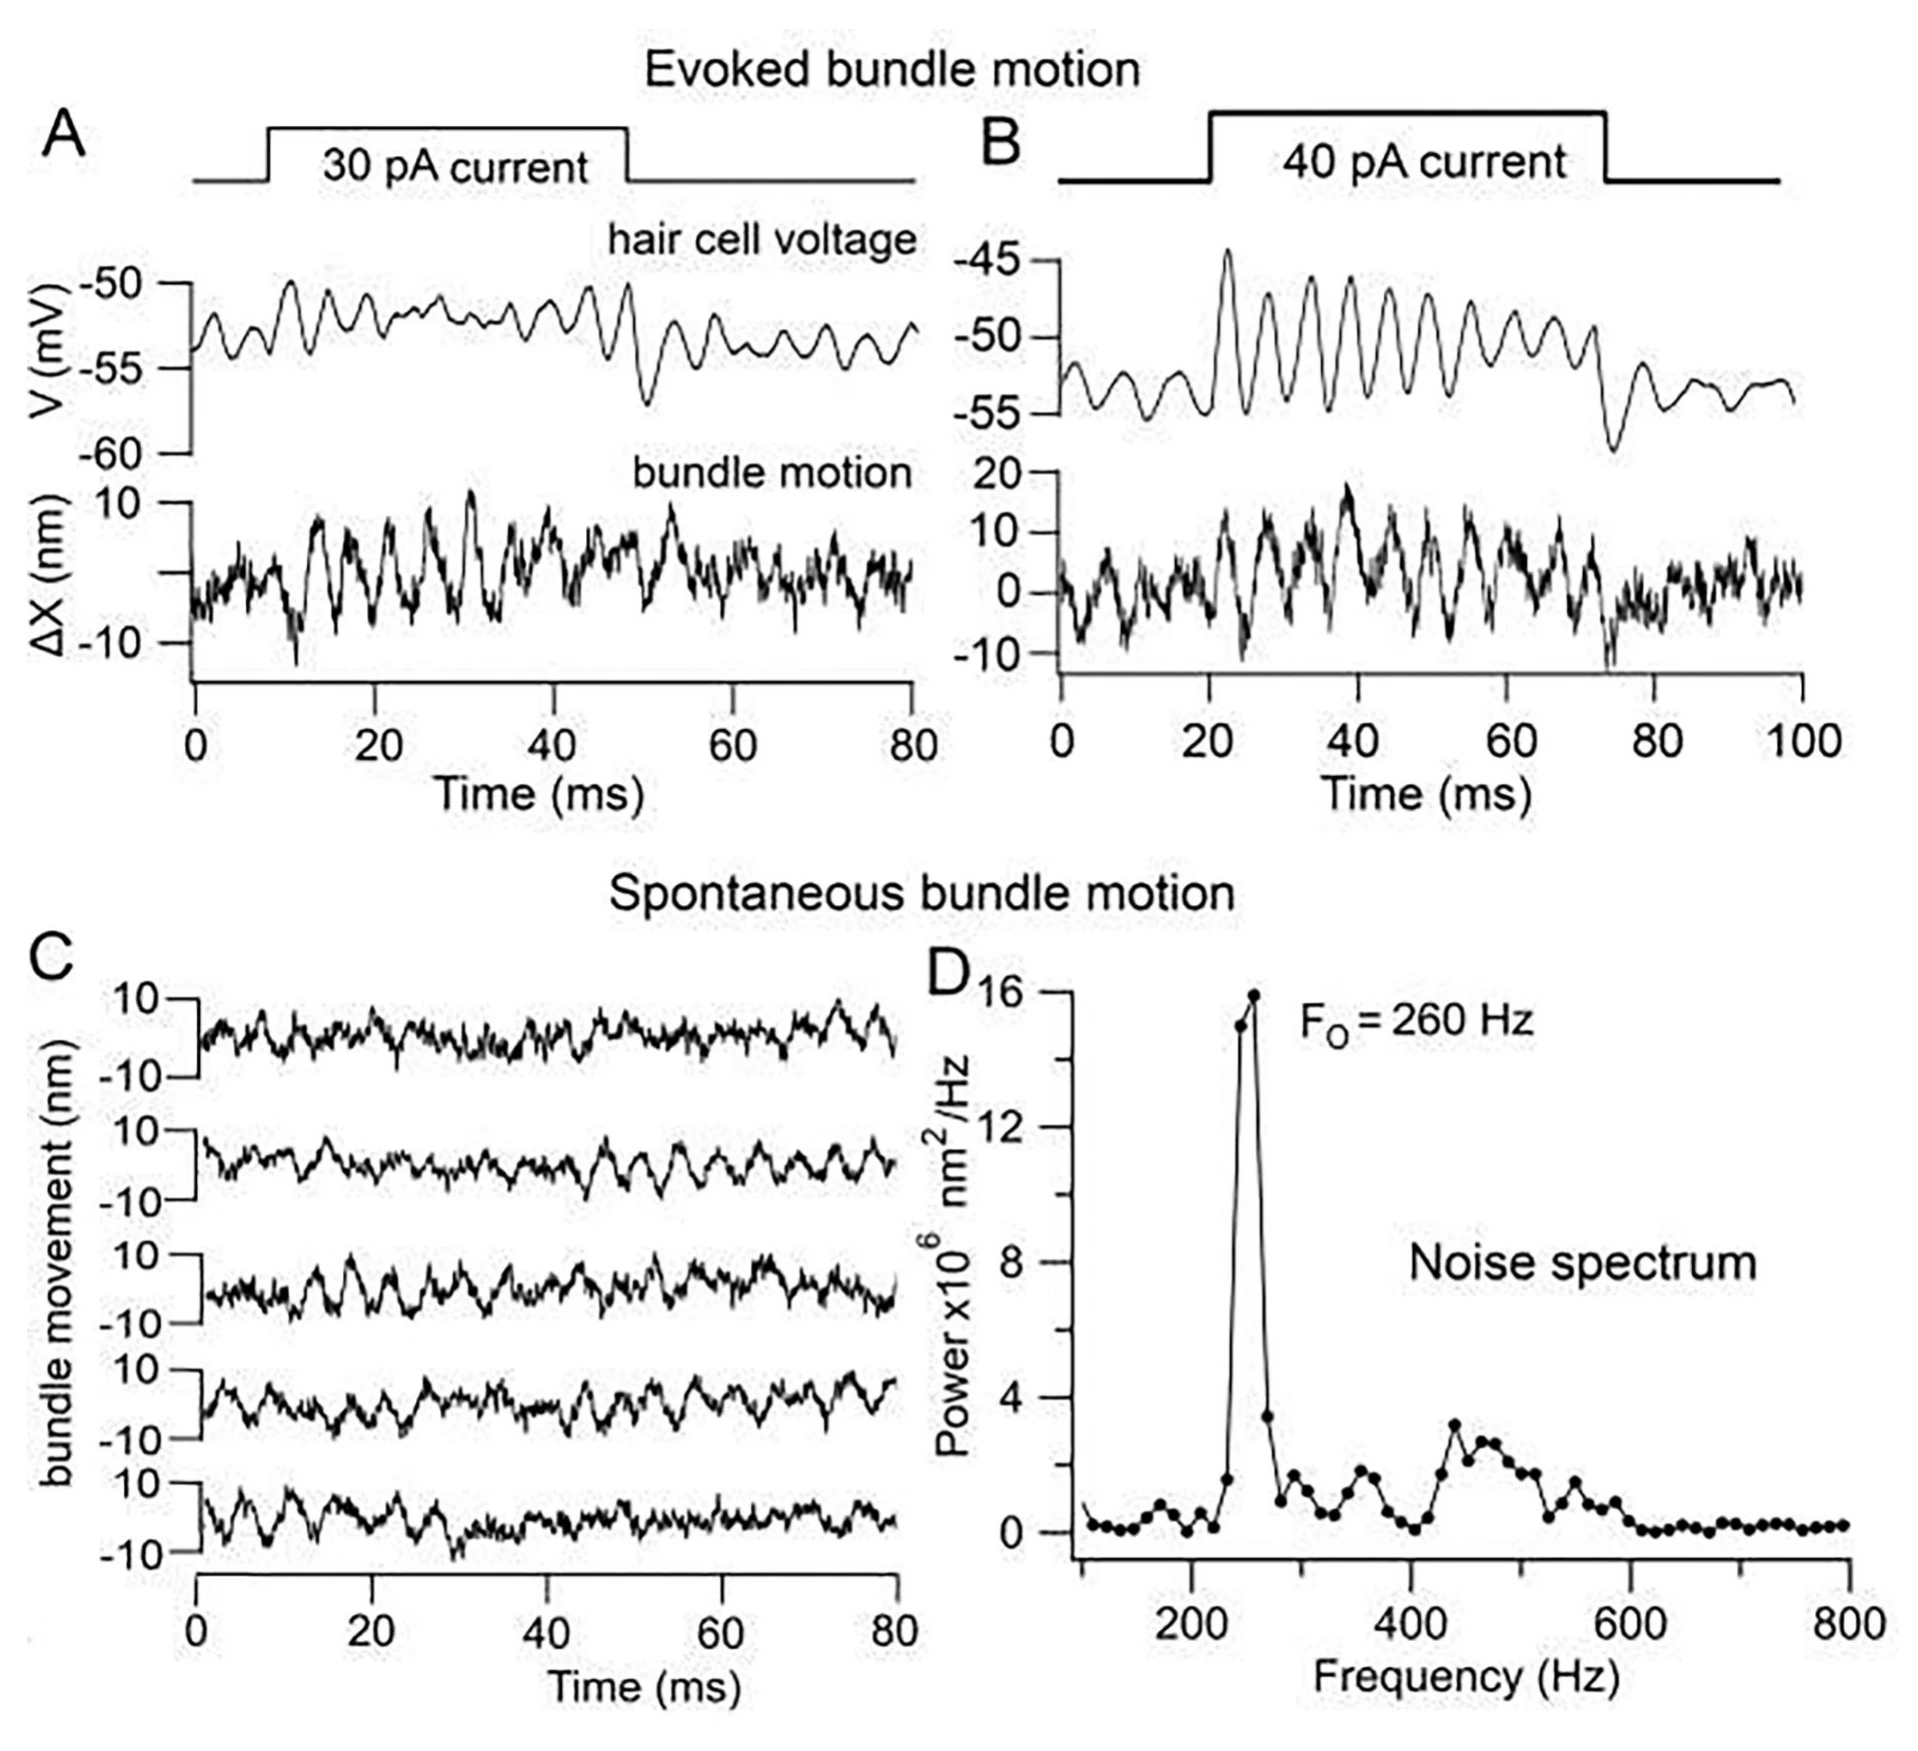
이 섬모다발의 움직임이 정확히 어떤 원리로 생기는지 확인하려고, 연구팀은 여러 약물을 넣어가며 반응을 지워봤어요. 그 결과를 정리하면 아래와 같아요.
| 처치 | 섬모다발 진동에 미친 효과 | 무엇을 알 수 있나 |
|---|---|---|
| 세포외 칼슘을 2.5mM에서 0.2mM로 낮추기 / CoCl2 2mM(전압 의존성 칼슘채널 차단제) | 가역적으로 크게 줄어듦 | 칼슘 유입에 크게 의존함(완전히 사라진 건 아니라서 “반드시 있어야 한다”까지는 말할 수 없어요) |
| TEA(칼륨채널 차단제, 반가림 농도 2.4mM) | 가역적으로 사라짐 | TEA에 민감한 칼륨전류가 관여함. 다만 칼륨 채널이 직접 관여하는 것인지, 막전위가 바뀐 데 따른 간접 효과인지는 논문도 미결로 남겨둠 |
| 살리실산나트륨 20mM(프레스틴 작용 차단) | 영향 없음 | 이 조건에서는 포유류 달팽이관의 프레스틴(prestin) 기전이 관여한다는 결과가 나오지 않음 |
| 디하이드로스트렙토마이신 0.2mM(기계전기변환 채널 차단제) | 영향 없음 | 이 조건에서는 소리를 감지하는 그 채널이 직접 움직임을 만든다는 결과가 나오지 않음(개구리에서 알려진 방식과도 다름) |
이 결과들을 종합하면, 섬모다발의 이 움직임은 포유류 귀에서 소리를 증폭하는 프레스틴 단백질이나, 개구리에서 보고된 기계전기변환 채널의 적응(adaptation) 과정과는 다른 것으로 보여요.
다만 “영향 없음”을 곧바로 “그 기전이 아니다”로 읽으면 안 되는 사정도 있어요. 논문은 도마뱀 표본에서 기계전기변환 전류를 기록하기가 어려워서, 쓴 농도의 디하이드로스트렙토마이신이 실제로 그 채널을 막았는지 이 실험 안에서는 확인하지 못했다고 밝혀요(대신 황소개구리, 병아리, 거북, 생쥐에서 이보다 10배 낮은 농도로도 막힌다는 근거를 들어 막혔을 것으로 봤어요). 약이 표적에 제대로 닿았다는 확인이 없으면, 음성 결과만으로 그 기전을 완전히 배제할 수는 없어요.
칼슘 유입과 칼륨 채널에 의존한다는 점에서, 앞서 설명한 전기적 공명을 만드는 바로 그 이온 채널들과 연관이 있는 것으로 보이지만, 정확히 어떤 경로로 섬모다발까지 움직이게 만드는지는 아직 밝혀지지 않았어요.
왜 섬모다발이 저절로 움직이는 게 중요할까
앞서 설명한 기계적 공명(실로폰 비유)만으로는 사실 충분한 민감도가 나오기 어려워요. 전문적으로 설명하면, 귀 속 액체의 점성 저항을 받는 섬모다발-살렛 복합체는 스스로 힘을 보태지 않는 수동 상태에서 감쇠(damping, 진동이 마찰 등으로 점점 잦아드는 성질)가 커서 “과도하게 감쇠된(overdamped)” 상태가 되기 쉽다고 알려져 있어요. 즉 그냥 두면 진동이 뚜렷한 봉우리 없이 밋밋하게 잦아들어서, 특정 음높이만 예민하게 골라내기 어렵다는 뜻이에요.
쉽게 말하면 실로폰 막대를 물속에 담가놓고 두드리는 상황을 상상하면 돼요. 공기 중에서는 막대가 정해진 음으로 맑게 울리지만, 물속에서는 저항 때문에 소리가 둔탁하게 뭉개져 버리죠. 귀 속 조직도 물기가 많은 환경이라 실제로는 이런 “물속 실로폰”과 비슷한 문제를 안고 있어요.
연구팀은 이 논문에서 확인한 전기로 유발되는 섬모다발의 움직임이, 바로 이 무뎌진 기계적 공명을 다시 예리하게 만들어주는 보조 장치일 수 있다고 제안해요. 세포가 스스로 만들어내는 작은 힘을 능동적으로 보태서, 물속에서 뭉개지던 진동에 다시 또렷한 봉우리를 만들어주는 거예요. 실제로 도마뱀의 귀는 스스로 아주 희미한 소리를 만들어내는 것으로 알려져 있어요(자발이음향방사, spontaneous otoacoustic emission이라고 불러요). 토케이게코에서는 이런 자발적 음이 1-4.5kHz 사이에서 최대 15개까지 봉우리로 나타나고, 봉우리 사이 간격이 250Hz 정도로 규칙적이에요. 크레에서도 이런 소리가 나오는지는 이번 연구팀이 따로 찾아보지 않았어요.
대신 연구팀은 전류 자극 없이 가만히 두어도 섬모다발이 저절로 규칙적으로 흔들리는 걸 확인했어요(그림 2C, D). 실온 21°C에서 측정한 진동수는 260Hz였어요. 논문은 여기에 전기적 조율의 온도 민감도(\(Q_{10}\) = 2.0, 온도가 10°C 오를 때 진동수가 2배가 된다는 뜻이에요)를 적용해서, 게코의 체온에 맞춰 보정하면 이 값이 2배로 늘어 500Hz를 넘을 것이라고 봤어요.
이 500Hz는 정확한 값이라기보다 자릿수를 가늠하는 어림값으로 보는 게 맞아요. 크레는 변온동물이라 정해진 체온이 따로 있는 게 아니고, 논문도 이 환산에 어떤 온도를 썼는지 밝히지 않았거든요. \(Q_{10}\)이 2.0이면 21°C에서 진동수가 2배가 되는 지점은 31°C인데, 같은 논문의 그림 1은 28°C를 기준으로 보정했으니 두 계산의 기준 온도가 서로 다른 셈이에요. 논문은 이렇게 보정한 값도 게코의 자발이음향방사 중에서는 여전히 낮은 쪽에 속한다고 적는데, 토케이게코의 1-4.5kHz와 나란히 놓고 보면 500Hz는 그 하한의 절반 정도라 아직 그 대역 안에 들어오지도 못해요. 그래도 세포가 스스로 진동을 만들어낸다는 점에서 그 소리를 만드는 메커니즘의 실마리로 볼 수 있다고 논문은 설명해요.
크레를 키우는 우리에게 남는 이야기
이 논문은 사육 팁을 주는 논문은 아니에요. 그보다는 우리가 매일 보는 이 작은 도마뱀붙이의 귀가, 겉보기엔 조용해 보여도 사실 아주 정교한 두 가지 방식(전기 신호로 울리는 세포와, 실로폰처럼 조율됐을 것으로 예측되는 물리적 구조)으로 소리의 높낮이를 가려낼 수 있게 만들어져 있다는 점이 재미있는 지점이에요. 앞에서 짚은 대로 기계적 공명 쪽은 아직 모델 예측이고, 전기로 유발되는 섬모다발 움직임이 실제 청각에서 증폭에 쓰인다는 것도 연구팀의 제안이에요. 크레가 사육장 밖에서 나는 소리, 다른 개체의 소리, 혹은 포식자가 낼 법한 소리에 반응하는 순간마다, 그 뒤편에서 이런 세포 단위의 조율이 작동하고 있으리라고 짐작해 볼 수 있어요.
다만 한 가지 알아둘 만한 사실은 있어요. 이 연구와 앞서 언급된 토케이게코 연구들을 보면 게코류의 귀는 대략 수백 Hz에서 5-6kHz 사이의 대역에 잘 반응하도록 조율돼 있어요. 사람 목소리나 일반적인 생활 소음의 상당 부분이 이 대역과 겹쳐요. 크레의 청각 기관이 반응할 수 있는 주파수 성분이 집 안 소리에 상당히 들어 있다는 뜻이에요. 다만 이건 떼어낸 기관에서 잰 조율 특성이지, 살아있는 크레의 청신경 반응이나 행동으로 확인한 가청 범위는 아니에요.
여기서 한 걸음 더 나가는 건 조심하는 게 좋아요. 이 논문은 몸에서 떼어낸 청각 기관에서 세포의 조율 방식을 들여다본 연구이지, 소음이 크레에게 스트레스가 되는지 건강에 해가 되는지를 본 연구가 아니에요. 실제로 문제가 되는지 따지려면 소리의 크기(음압), 거리, 지속 시간, 그리고 그 소리에 크레가 어떻게 행동하는지를 따로 봐야 하는데, 그런 자료는 이 논문에 없어요. “들리는 대역이 겹친다”에서 “그러니 큰 소리를 피해야 한다”로 곧장 이어지지는 않는다는 뜻이에요.
이 글은 아래 원 논문을 직접 읽고 참고문헌까지 확인해서 정리했어요.
출처: Fettiplace R, Beurg M. “The mechanisms of frequency tuning in gecko auditory hair cells.” Hearing Research, 2025;457:109186. https://doi.org/10.1016/j.heares.2025.109186 (전문: PMC11821432)
본문의 그림 3장은 위 논문의 Figure 1, Figure 6, Figure 7을 그대로 가져왔어요. 그중 Figure 1은 논문이 같은 연구팀의 2022년 논문(Beurg M, Gamble T, Griffing AH, Fettiplace R. “Atypical tuning and amplification mechanisms in gecko auditory hair cells.” PNAS, 2022;119:e2122501119)에서 가져와 다듬은 그림이에요. 대표 사진은 Rhacodactylus ciliatus male.jpg by Hexasoft, CC BY-SA 3.0을 크롭해서 사용했어요.

One Comment