크레 유전체 지도, 두 번째 팀이 또 완성했어요: 이번엔 개체수 변화 곡선까지
지난 글에서 미국 남가주대(USC) 연구팀이 크레(크레스티드 게코, 학명 Correlophus ciliatus)의 유전체 지도를 완성한 이야기를 전해드렸었죠. 그런데 논문을 더 찾아보다가 재미있는 사실을 발견했어요. 그 논문이 나오고 딱 9일 뒤, 중국 상하이해양대학교·안후이사범대학교 공동 연구팀(Huang, Zhang, Lu, Huang, Li)도 따로 크레의 유전체 지도를 완성해서 학술지 G3(미국유전학회 발행)에 발표했어요. 이 논문은 2024년 11월 15일 온라인으로 먼저 공개됐고, 정식 권·호는 2025년 2월호에 실렸어요(그래서 인용 표기는 2025년으로 나와요). 두 논문은 서로를 인용하지 않고, 투고 시점도 12일밖에 차이가 나지 않아요(USC 논문 투고 8월 6일, 이번 논문 접수 8월 18일). USC 논문의 프리프린트가 공개된 건 그보다 뒤인 9월 28일이고요. 서로 다른 두 팀이 각자 진행한 연구가 9일 간격으로 세상에 나온 셈이에요.
같은 종의 유전체를 서로 다른 팀이, 서로 다른 장비로 각각 조립하면 무슨 일이 생길까요? 이번 글에서는 이 두 번째 논문의 내용을 원문·참고문헌까지 확인해서 정리하고, 지난 글에서 다룬 첫 번째 논문과 결과를 나란히 비교해볼게요.
이번 표본은 어디서 왔을까
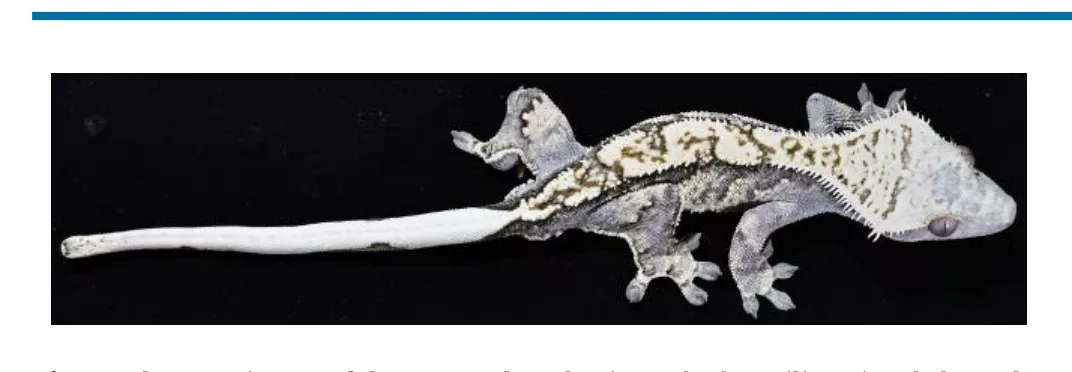
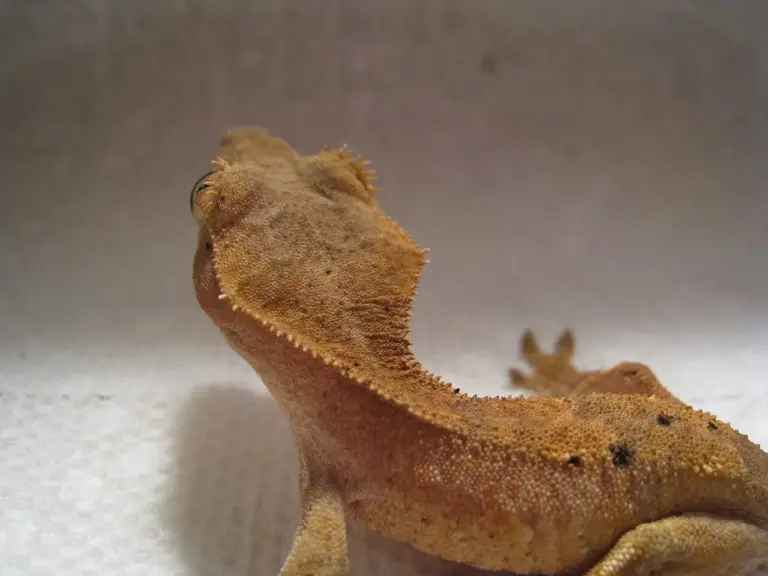
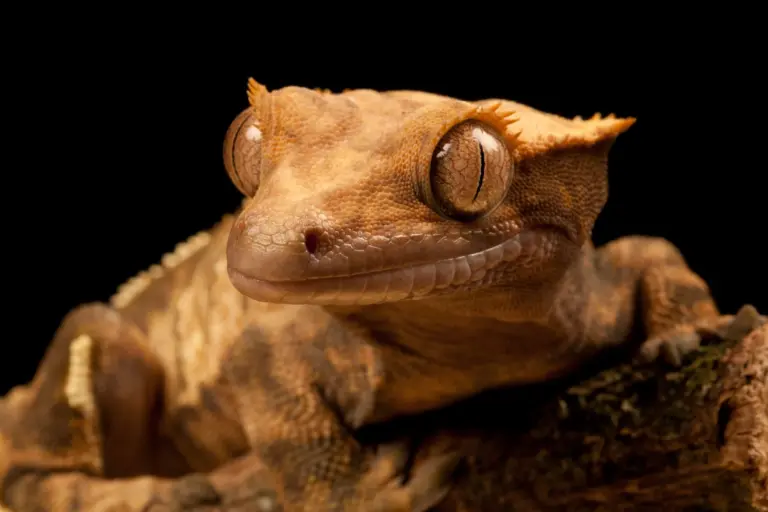
이번 연구에 쓰인 개체는 중국의 한 반려동물 매장에서 구입한 성체 수컷 크레예요(아래 사진). 연구팀은 근육 조직에서 게놈 해독용 DNA를, 간 조직에서 Hi-C 분석용 DNA를 뽑았고, 유전자 예측의 정확도를 높이려고 근육·심장·피부·간·반음경·폐·척수·혀·정낭·눈·뇌까지 무려 11개 조직에서 RNA를 따로 채취했어요. 지난 글의 USC 논문은 배아 한 개체에서만 RNA를 뽑았는데, 이번 연구는 성체의 다양한 조직을 훑은 게 차이점이에요.
어떻게 지도를 그렸을까
전문적으로 설명하면 이번 팀은 나노포어(Oxford Nanopore) 롱리드 시퀀싱(137.55Gb)과 일루미나 짧은 리드(135.86Gb)를 결합해 초안을 만들고, Hi-C 데이터(206.32Gb)로 염색체 단위 스캐폴딩을 했어요. 지난 글에서 설명한 “직소 퍼즐” 비유를 다시 쓰면, 이번엔 퍼즐 조각을 자르는 도구(나노포어)만 다른 회사 제품을 쓴 셈이에요. 여기에 유전자 예측에 쓰려고 따로 뽑은 RNA 시퀀싱 데이터 70.21Gb까지 더하면 이번 연구가 생산한 시퀀싱 데이터는 모두 549.94Gb예요. 사람 게놈(약 3Gb) 크기의 180배가 넘는 양인데, 이 합계에는 성격이 다른 데이터가 섞여 있어서 게놈을 180번 읽었다는 뜻은 아니에요. 게놈 자체를 몇 겹으로 읽었는지는 논문이 따로 밝혀 뒀어요. 일루미나 81.83배, 나노포어 82.86배, Hi-C 124.29배예요.
여기서도 오염 해프닝이 있었어요. 조립된 조각(스캐폴드) 중 9개가 사람(Homo sapiens), 고릴라(Gorilla gorilla), 아프리카에 사는 쥐새류(mousebird) Colius striatus 등의 서열과 높은 유사성을 보여 최종 지도에서 제외됐어요. 논문은 이 서열들이 어디서 비롯됐는지까지 따지지 않고, 크레의 것이 아닌 비표적 서열로 판정해 걷어냈어요. 지난 글의 USC 논문도 세균(방선균) 서열을 같은 식으로 걷어냈고요. 유전체를 조립할 때는 이렇게 대상 종의 것이 아닌 서열이 섞이지 않았는지 점검하고 제거하는 절차가 필요해요.
두 지도를 나란히 놓고 비교해보면
같은 종을 다룬 두 논문의 핵심 수치를 표로 정리했어요.
| 지표 | USC팀(Gigabyte, 2024년 11월 6일) | 중국팀(G3, 2024년 11월 15일 온라인) |
|---|---|---|
| 전체 유전체 크기 | 1.65 Gb | 1.66 Gb |
| 스캐폴드 N50 | 109 Mb | 109.97 Mb |
| 염색체(19개)에 배치된 비율 | 99.54% | 99.52% |
| GC 함량 | 45% | 45.01% |
| 예측된 단백질 코딩 유전자 수 | 30,780개 | 21,065개 |
| 반복서열 비율 | 40.41% | 41.98% |
| 이형접합률 | 약 0.51% | 약 0.616% |
| BUSCO 완성도 | 99.6%(eukaryota_odb10, 255개 기준 유전자) | 90.3%(sauropsida_odb10, 7,480개 기준 유전자) |
전체 크기·N50·염색체 배치 비율·GC 함량은 거의 똑같아요. 이게 왜 중요하냐면, 서로 다른 롱리드 장비(PacBio와 나노포어)와 다른 조립 프로그램을 쓴 두 팀이 각각 도달한 결론이 거의 같다는 뜻이거든요. 서로 다른 방법으로 같은 답이 나왔으니, 크레 게놈이 실제로 1.65-1.66Gb 크기이고 한 벌이 19개 염색체로 이루어져 있다는 사실은 이제 상당히 믿을 만하다고 볼 수 있어요(크레의 체세포 염색체 수는 그 두 배인 2n=38이에요).
반면 유전자 수(30,780개 vs 21,065개)와 BUSCO 완성도(99.6% vs 90.3%)는 차이가 꽤 커요. 이것만 보면 한쪽이 훨씬 부실해 보이지만, 실제로는 “무엇을 기준으로 쟀는지”가 다른 탓이 커요. BUSCO는 “그 계통이라면 거의 예외 없이 갖고 있을 유전자 목록”과 대조해 완성도를 매기는 검사인데, 그 목록(데이터셋)을 무엇으로 잡느냐에 따라 검사 자체가 달라져요. USC팀은 진핵생물 전체를 아우르는 eukaryota_odb10(255개 유전자)을, 중국팀은 파충류·조류 계통에 맞춘 sauropsida_odb10(7,480개 유전자)을 썼어요. 검사 대상 유전자의 구성도 다르고 개수는 30배 가까이 차이 나니, 두 점수는 애초에 같은 자로 잰 값이 아니라 나란히 놓고 우열을 가릴 수 없어요. 중국팀 논문도 자기 점수를 USC팀과 견주는 대신 다른 게코 게놈의 BUSCO 값과 비교했어요(일본도마뱀붙이 Gekko japonicus 93.8%, Townsend 드워프 게코 85.5-88.3%). 다만 논문이 이 비교값들이 어느 데이터셋으로 나온 것인지까지 밝히지는 않았어요. 유전자 수 차이도 비슷한 이유예요. 유전자 예측은 RNA 증거를 얼마나 폭넓게 넣었는지, 최종 필터링 기준을 얼마나 엄격하게 잡았는지에 따라 결과가 꽤 달라져요. 같은 생물이라도 팀마다, 방법마다 숫자가 다르게 나오는 건 유전체학에서 흔한 일이에요.
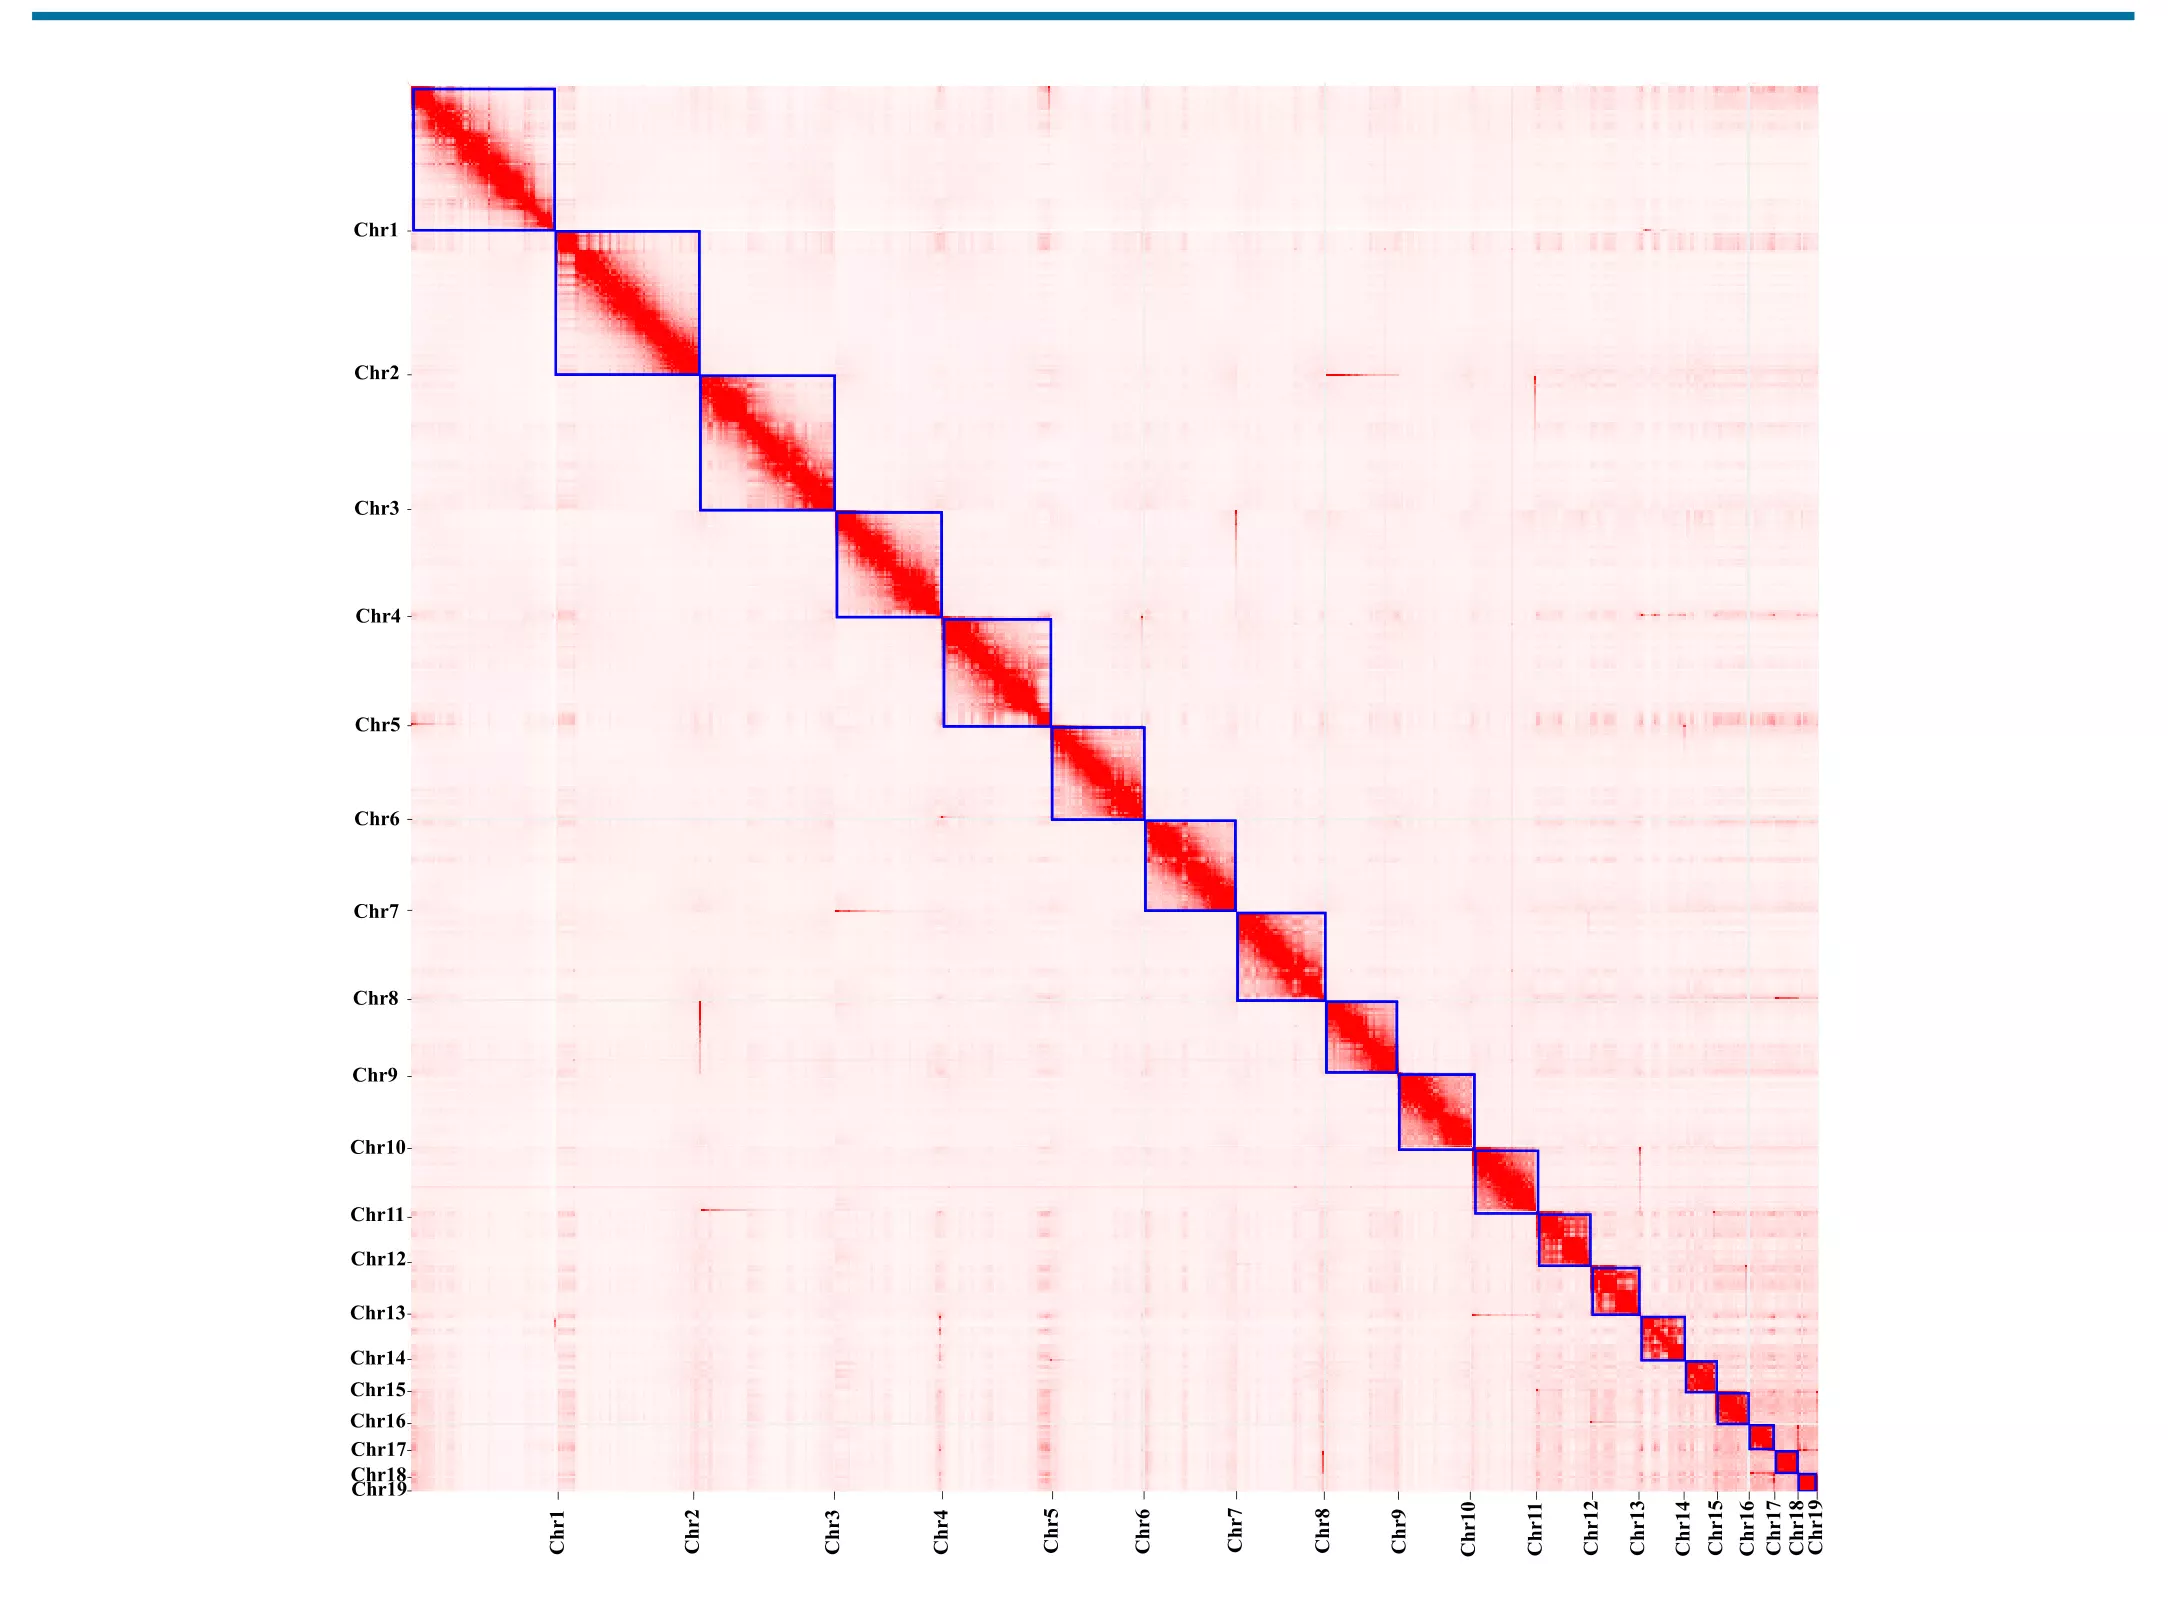
이번 논문의 염색체 지도(Figure 3)예요. 지난 글에서 본 USC팀 지도와 원리는 같지만, 이번 건 각 염색체에 Chr1부터 Chr19까지 번호가 매겨져 있어서 훨씬 보기 편해요. 대각선을 따라 늘어선 19개의 파란 사각형이 각각 하나의 염색체예요.
연구팀은 여기서 한 걸음 더 나가, 크레의 염색체를 Townsend 드워프 게코(Sphaerodactylus townsendi)의 것과 맞대어 비교했어요. 이 종은 크레와 이웃해 사는 게코가 아니에요. 카리브해의 푸에르토리코에 사는, 크레와는 과(科)부터 다른 꽤 먼 친척이에요. 그런데도 비교 상대로 뽑힌 건 게코 무리에서 염색체 단위 유전체가 공개된 종 자체가 손에 꼽을 만큼 적기 때문이에요. 이번 논문이 나오기 전까지 게코 7개 과 중 염색체 단위 게놈이 있는 건 3개 과뿐이었거든요. 계통을 그린 나무 그림도 함께 실었는데, 크레를 포함한 뱀·도마뱀(유린목) 15종에 바깥 비교군으로 거북 1종을 넣어 크레의 진화적 위치를 확인했고, 나온 나무 모양은 앞선 연구와 같았어요.
염색체를 맞대어 본 결과, 두 종 사이에서 융합 또는 분열로 볼 수 있는 재배열이 3곳 발견됐어요. 예를 들어 크레의 5번과 19번 염색체에 해당하는 구간이 Townsend 드워프 게코에서는 하나의 염색체에 모여 있어요. 다만 이 비교 하나만으로는 크레 쪽에서 하나가 둘로 갈라진 건지, 상대 종 쪽에서 둘이 하나로 합쳐진 건지 방향까지는 알 수 없어요. 방향을 가리려면 바깥의 여러 종을 함께 놓고 조상의 염색체 상태를 복원해야 하는데, 이번 논문은 거기까지 가지는 않았어요. 어느 쪽이든 오랜 세월 진화하면서 염색체가 재배열됐다는 증거인 건 분명해요.
유전체 한 장에 남은 개체수 변화의 흔적
이번 논문에서 가장 흥미로운 부분은 여기예요. 연구팀은 PSMC라는 기법으로 크레의 과거 개체수 변화를 추정했어요. 전문적으로 설명하면, 한 개체가 부모에게서 물려받은 두 벌의 염색체 사이에 남은 차이(이형접합 패턴)가 시간에 따라 어떻게 분포하는지를 분석해서, 옛날에 그 종의 개체수가 많았는지 적었는지를 거꾸로 추정하는 방법이에요. 쉽게 말하면 가계도를 거슬러 올라가며 “이 시기엔 친척이 많았을까 적었을까”를 유전자 흔적만으로 추리하는 유전학판 타임머신인 셈이에요. 여기서 한 가지 짚고 갈 게 있어요. PSMC가 내놓는 값은 실제로 세어 본 개체 수가 아니라 유효집단크기(effective population size)예요. 유전적 다양성이 유지되는 정도를 개체 수로 환산한 값이라, 실제 마릿수와는 다를 수 있어요. 게다가 그 대상은 오늘날의 크레 개체군이 아니라, 이 표본 한 마리의 게놈에서 거슬러 올라간 조상 계통이에요. 그러니 아래 그래프도 “그때 뉴칼레도니아에 크레가 몇 마리 살았다”가 아니라 “크레로 이어지는 계통의 유전적 다양성이 이런 굴곡을 그렸다”로 읽는 게 정확해요.
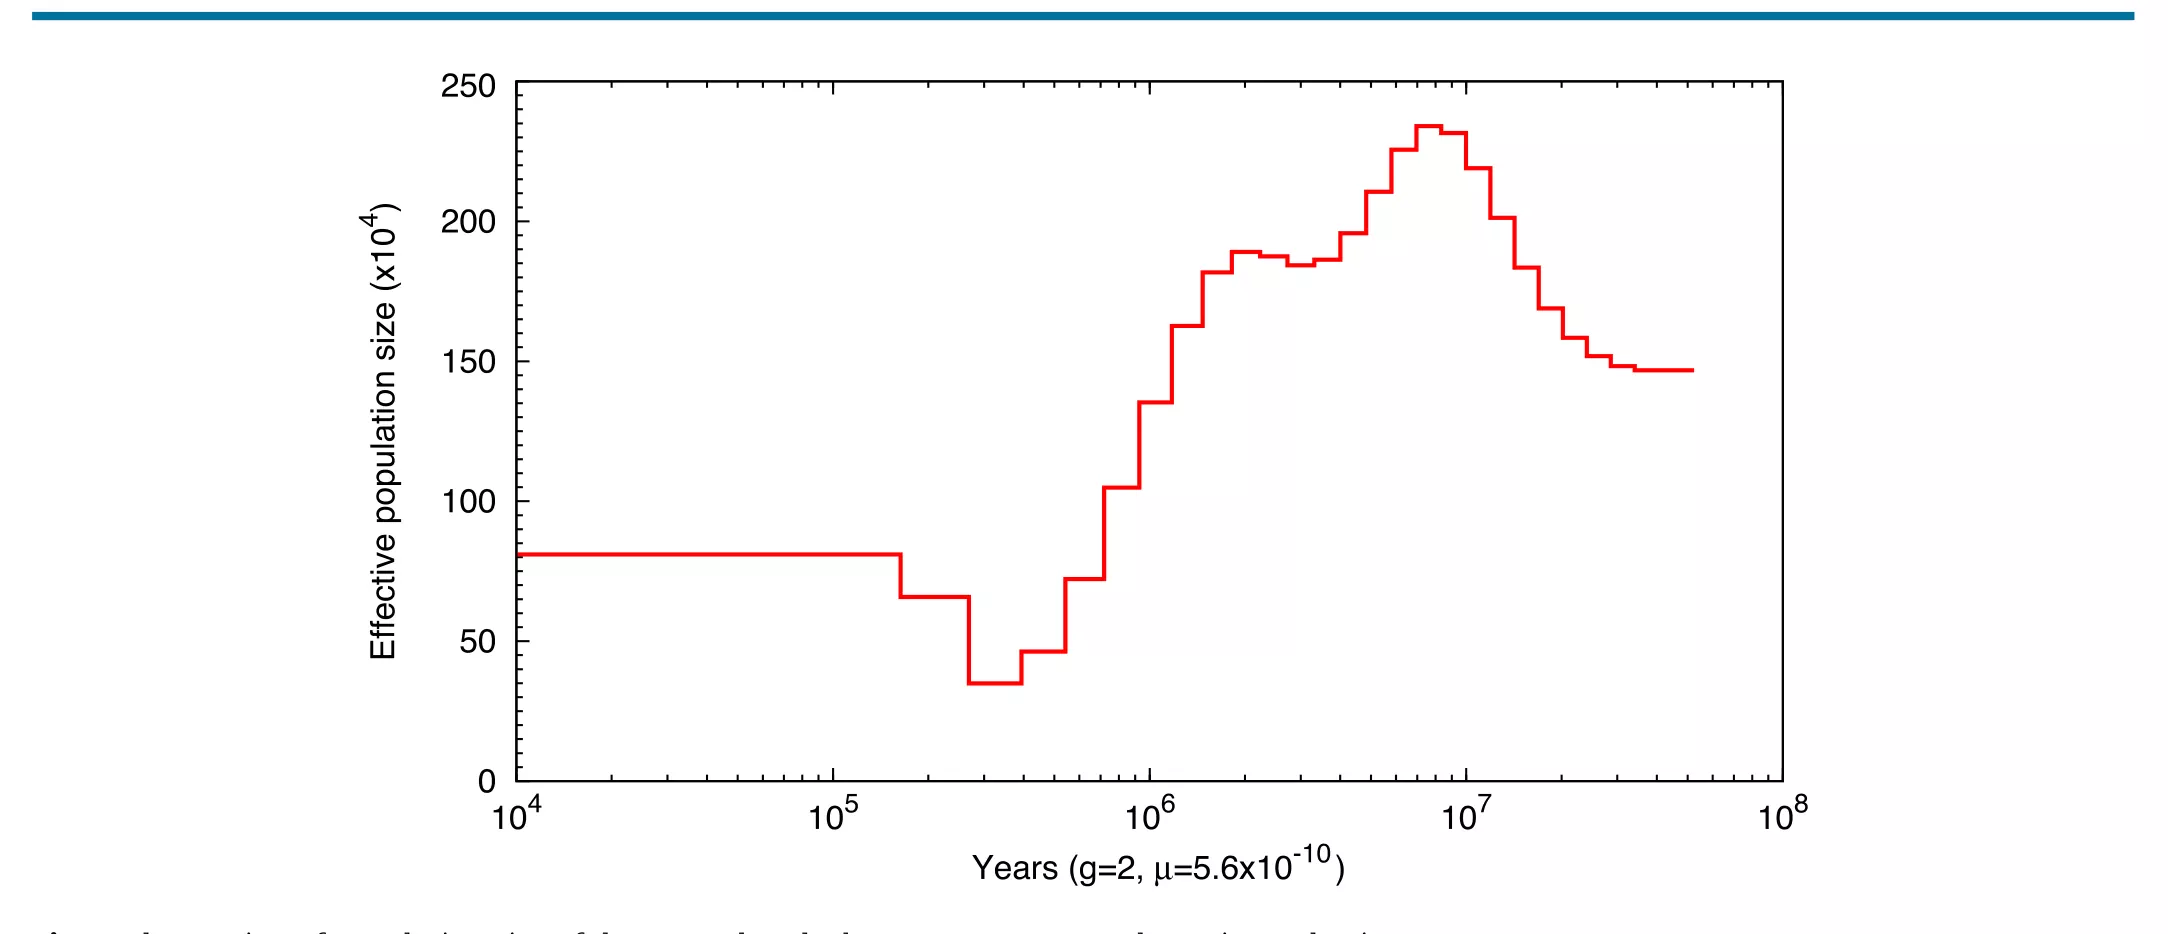
그래프를 보면 이런 흐름이 보여요. 곡선은 가장 오래된 구간에서 시작해 완만하게 올라가다가 700만 년 전 근처에서 정점을 찍고 꺾여요. 이 구간이 언제부터인지는 논문 안에서도 표기가 조금씩 어긋나요. 본문은 분석 범위를 1만 년 전부터 1억 년 전까지로 잡고 증가 구간을 “1억 년 전부터 1천만 년 전까지”라고 적었는데, 그림 6의 설명글은 범위를 1천만 년 전부터 1만 년 전까지라고 적었고, 실제 곡선은 5천만 년 전 근처에서 시작해요. 그래서 시작 연대를 못 박기보다 곡선이 그리는 굴곡 쪽을 보는 게 안전해요. 연구팀은 이 증가를 백악기 후기(약 8천만 년 전)에 뉴칼레도니아를 품고 있던 질란디아(Zealandia)가 호주에서 갈라져 나와 고립된 사건과 시기적으로 연결해 해석했어요. 고립된 땅이 고유한 생물이 진화할 여건을 만들었다는 설명인데, 논문도 “그럴 가능성이 있다”고 적었을 뿐이에요. PSMC 곡선 자체가 그 인과를 검증해 주지는 않고, 애초에 이 증가는 수천만 년에 걸친 완만한 추세라서 특정 사건 하나로 설명하기는 어려워요. 뒤에서 볼 PSMC의 한계도 바로 이 오래된 구간에서 가장 크게 작용하고요.
이후로는 계속 줄어드는데, 연구팀은 플라이오세 후기(약 300만-260만 년 전)부터 홍적세 내내 이어진 약 20차례의 한랭-온난 반복을 원인으로 봤어요. 다만 논문이 근거로 든 기후 변동 기록은 뉴칼레도니아가 아니라 뉴질랜드의 것이에요. 둘 다 질란디아에 속한 땅이지만 위도도 기후도 다른 별개의 섬이라, 이 설명을 크레 서식지에 그대로 옮겨 적기에는 무리가 있어요. 그러다 약 30만 년 전부터 다시 회복되기 시작해요(논문은 30만-40만 년 전의 확장이 온화한 기후와 맞물렸을 수 있다고 보면서, 해수면 변동이나 화산 활동 같은 요인도 함께 작용했을 것으로 언급했어요). 그리고 약 10만 년 전부터는 곡선이 평탄해져요. 여기서 주의할 게 있어요. 이 평평한 구간을 “지금 크레 개체수가 그 수준이다”로 읽으면 안 돼요. 곧 볼 것처럼 PSMC는 가장 최근 구간의 해상도가 떨어지는 데다, 이 그래프는 1만 년 전에서 끊겨요. 사람이 뉴칼레도니아에 들어온 뒤의 변화도, 지금 크레를 IUCN 취약종으로 만든 서식지 감소도 이 곡선에는 아예 담겨 있지 않아요.
다만 연구팀 스스로도 이 방법의 한계를 밝혔어요. PSMC는 아주 최근(1만 년 이내)과 수백만 년보다 먼 과거, 양쪽 끝에서 해상도가 떨어져요. 그래서 1억 년 전 같은 깊은 시간대의 곡선은 실제 개체수 변화가 아니라 모형의 한계에서 나온 허상일 수 있다고 논문은 밝혔어요. 또 PSMC는 다른 개체군과 유전자가 섞이는 사건(유전자 흐름)을 따로 집어내지 못해요. 그런 일이 있었어도 신호가 사라지는 게 아니라 개체수 변화처럼 읽혀 버려서, 변화가 언제 얼마나 일어났는지에 대한 추정이 어긋날 수 있다는 뜻이에요. 그러니 큰 흐름은 참고할 만하지만, 세부 시점이나 정확한 수치까지 곧이곧대로 믿기보다는 “대략 이런 굴곡이 있었다” 정도로 받아들이는 게 맞아요.
앞으로는
논문은 크레가 앞으로 CRISPR-Cas9 같은 유전자 편집 실험에도 좋은 후보가 될 거라고 내다봤어요. 이미 2019년에 다른 도마뱀인 브라운아놀(Anolis sagrei)의 미수정란에 CRISPR 유전자 편집을 적용한 사례가 있었는데(브라운아놀은 게코가 아니라 이구아나 계열이라 크레와는 꽤 먼 도마뱀이에요), 크레도 발가락에 접착판을 가진 나무 위 생활자이면서 사육 상태에서 번식을 잘 하는 종이라 비슷한 실험에 적합하다는 거예요. 정밀한 유전체 지도가 있으니 감각기관 구조나 지난 글에서 다룬 꼬리 재생 능력처럼 크레 특유의 흥미로운 형질들을 분자 수준에서 파고들 길이 열린 셈이에요.
정리하면, 이번 논문으로 크레가 속한 딥로닥틸리과(Diplodactylidae)는 염색체 단위 유전체가 보고된 게코의 네 번째 과(科)가 됐어요(게코는 모두 7개 과예요). 그리고 서로 다른 두 팀이 각각 완성한 지도가 거의 같은 크기·구조였다는 사실 자체가, 크레의 유전체 지도가 이제 여러 후속 연구의 확고한 기초 자원이 됐다는 걸 보여줘요.
이 글은 아래 원 논문을 직접 읽고 참고문헌까지 확인해서 정리했어요.
출처: Huang R, Zhang J, Lu L, Huang S, Li C. “High-quality genome assembly and annotation of the crested gecko (Correlophus ciliatus).” G3: Genes, Genomes, Genetics, 2025;15(2):jkae265. https://doi.org/10.1093/g3journal/jkae265
본문 이미지(Figure 1, 3, 6)는 위 논문에서 그대로 가져왔으며, 원 논문이 CC BY 4.0 라이선스로 공개돼 있어 출처 표기 조건 하에 재사용했어요.
4 Comments